Opgaver til A7.5
Opgaverne hører til afsnit A7.5 PCR: kopiering i et reagensglas. Prøv selv, før du åbner hjælpen under opgaven. Kapitel A7 er et temakapitel uden for kernestoffet, og opgaverne bruger kernestof fra resten af bogen på DNA.
Opgave A7.5.1: Hvad skal DNA-polymerase bruge?
Enzymet DNA-polymerase bygger nye DNA-strenge. I et forsøg blandes fem reagensglas, som alle holdes ved den temperatur, hvor enzymet arbejder bedst. Tabellen viser, hvad der er i hvert glas. En primer er en kort streng, som sætter sig på skabelonstrengen og ender med en fri OH-gruppe på carbonatom 3′.
| Glas | Skabelonstreng | Primer | Nucleotider | DNA-polymerase |
|---|---|---|---|---|
| 1 | ja | ja | med tre phosphatgrupper | ja |
| 2 | ja | nej | med tre phosphatgrupper | ja |
| 3 | nej | ja | med tre phosphatgrupper | ja |
| 4 | ja | ja | med én phosphatgruppe | ja |
| 5 | ja | ja | med tre phosphatgrupper | nej |
- Hvilke tre ting skal DNA-polymerase have for at kunne bygge en ny DNA-streng?
- I hvilket af de fem glas bliver der dannet nyt DNA?
- Forklar for hvert af de fire andre glas, hvorfor der ikke bliver dannet nyt DNA.
- Hvilke to produkter dannes, hver gang DNA-polymerase har sat ét nucleotid på en streng?
De tre ting, DNA-polymerase skal bruge, står som en punktliste under overskriften “Enzymet, der bygger DNA” i afsnit A7.5. Sammenlign listen med hver række i tabellen, og find det, der mangler i glasset.
Tænk på rollerne i den reaktion, DNA-polymerase katalyserer: OH-gruppen i 3′-enden af primeren er nucleofilen, og de to yderste phosphatgrupper i nucleotidet er den udgående gruppe.
Du kan begynde forklaringerne sådan: “I glas 2 mangler …, så der er ingen fri OH-gruppe, der kan …” “I glas 3 mangler …, så enzymet kan ikke aflæse …” “I glas 4 har nucleotiderne kun én phosphatgruppe, så der er ingen …, der kan forlade molekylet.” “I glas 5 mangler …, og uden en katalysator …”
DNA-polymerase skal have en skabelonstreng, som den kan aflæse, en kort streng (en primer), der sidder på skabelonstrengen og ender med en fri OH-gruppe på carbonatom 3′, og nucleotider med tre phosphatgrupper.
Kun i glas 1 bliver der dannet nyt DNA. Det er det eneste glas, der både har skabelonstreng, primer, nucleotider med tre phosphatgrupper og DNA-polymerase.
Glas 2 mangler primeren. DNA-polymerase kan ikke begynde på bar bund: der er ingen fri OH-gruppe på carbonatom 3′, som kan være nucleofil og angribe det første nucleotid.
Glas 3 mangler skabelonstrengen. Enzymet har ingen baser at aflæse, så det kan ikke vælge det rigtige nucleotid, og primeren har ikke noget at sidde på.
Glas 4 har nucleotider med kun én phosphatgruppe. De mangler de to yderste phosphatgrupper, som skal forlade molekylet som en diphosphation. Uden en udgående gruppe sker reaktionen ikke.
Glas 5 mangler DNA-polymerase. Enzymet er katalysatoren, og uden det er reaktionen mellem OH-gruppen og nucleotidet alt for langsom til, at der bliver dannet DNA.
- Der dannes en streng, som er ét nucleotid længere og igen ender med en fri OH-gruppe på carbonatom 3′, og en diphosphation.
Opgave A7.5.2: Nucleofil og udgående gruppe
Figuren viser 3′-enden af en ny DNA-streng og de tre phosphatgrupper i det nucleotid, som DNA-polymerase er ved at sætte på strengen. Phosphoratomerne har numrene 1, 2 og 3, og phosphoratom 1 sidder nærmest nucleotidets sukker. Bindingerne i kæden af phosphatgrupper har bogstaverne a til e.
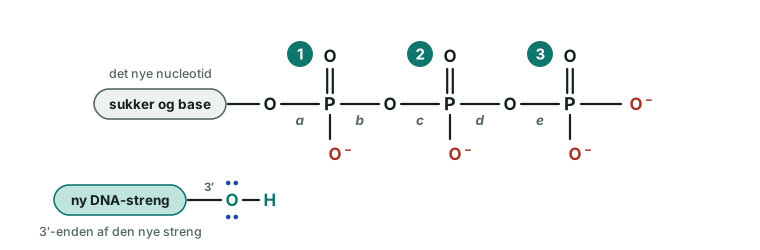
Reaktionen ligner den nucleofile substitution fra afsnit A5.6, hvor brommethan reagerer med en hydroxidion:
CH3Br + OH− → CH3OH + Br−
- Hvilken gruppe i figuren er nucleofilen? Hvad er det ved gruppen, der gør den til en nucleofil?
- Hvilket af de tre phosphoratomer angriber nucleofilen?
- Hvilken af bindingerne a til e bliver brudt, og hvad kaldes den gruppe, der forlader nucleotidet?
- Sammenlign reaktionen mellem brommethan og en hydroxidion med reaktionen i figuren. Lav et skema med rækkerne nucleofil, angrebet atom og udgående gruppe.
- I det aktive center i DNA-polymerase sidder to magnesiumioner, Mg2+, tæt på phosphatgrupperne. Forklar, hvad der holder magnesiumionerne og phosphatgrupperne sammen, og hvordan magnesiumionerne hjælper nucleofilen.
En nucleofil har et ledigt elektronpar, som den bruger til at danne en ny binding. Den udgående gruppe forlader molekylet og tager bindingens to elektroner med sig. Find de to roller i figuren: Hvilken gruppe på den nye streng har ledige elektronpar? Og hvilken del af nucleotidet skal ikke med over på strengen?
Nucleotidets sukker og base skal ende på den nye streng, og de sidder på phosphoratom 1. Det er derfor phosphoratom 1, der skal have en ny binding, og det, der sidder på den anden side af phosphoratom 1, skal væk.
I reaktionen mellem brommethan og en hydroxidion er hydroxidionen nucleofilen, carbonatomet bliver angrebet, og bromidionen er den udgående gruppe.
Du kan begynde svaret om magnesiumionerne sådan: “Magnesiumionerne er … ladede, og phosphatgrupperne er … ladede, så de holdes sammen af … Magnesiumionerne trækker i elektronerne, så phosphoratomet bliver mere …”
Nucleofilen er OH-gruppen på carbonatom 3′ i enden af den nye streng. Oxygenatomet har ledige elektronpar, og det bruger et af dem til at danne en ny binding.
Nucleofilen angriber phosphoratom 1, som sidder nærmest nucleotidets sukker. Så ender hele nucleotidet med sukker og base på strengen. Angreb nucleofilen phosphoratom 3, ville strengen kun få en phosphatgruppe på og ikke et nucleotid.
Binding b mellem phosphoratom 1 og oxygenatomet over mod phosphoratom 2 bliver brudt, og oxygenatomet tager bindingens to elektroner med sig. De to yderste phosphatgrupper forlader nucleotidet samlet. De er den udgående gruppe, en diphosphation.
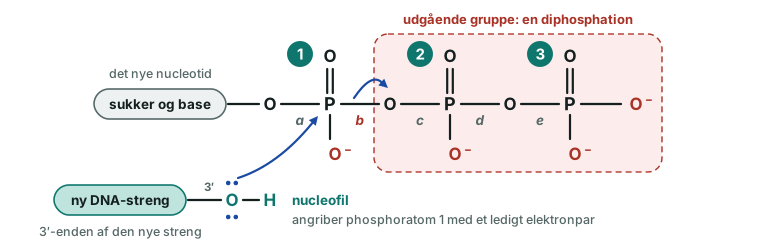
Hydrogenatomet fra OH-gruppen afgives som en hydron til opløsningen.
- Rollerne er de samme i de to reaktioner:
| Påsætning af et nucleotid | Brommethan og hydroxid | |
|---|---|---|
| Nucleofil | OH-gruppen i 3′-enden af strengen | hydroxidionen, OH− |
| Angrebet atom | phosphoratom 1 i nucleotidet | carbonatomet i brommethan |
| Udgående gruppe | diphosphationen | bromidionen, Br− |
Forskellen er, at nucleofilen angriber et phosphoratom og ikke et carbonatom, når DNA-polymerase sætter et nucleotid på.
- Magnesiumionerne er positivt ladede, og phosphatgrupperne er negativt ladede. De holdes sammen af ion-ionbindinger, altså tiltrækningen mellem modsatte ladninger. Uden magnesiumionerne ville de negative ladninger på phosphatgrupperne frastøde nucleofilens elektronpar. Magnesiumionerne trækker i elektronerne omkring phosphatgrupperne, så phosphoratom 1 bliver mere elektrofilt og lettere at angribe.
Opgave A7.5.3: Gør den nye streng færdig
Figuren viser en skabelonstreng og en ny DNA-streng, som DNA-polymerase er i gang med at bygge. Den nye streng har indtil nu 5 nucleotider og ender med en fri OH-gruppe. Pladserne har numrene 1 til 12.
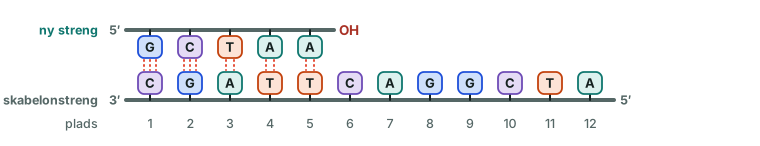
- Hvilken base har det nucleotid, DNA-polymerase sætter på plads 6 i den nye streng? Begrund svaret.
- Skriv sekvensen for hele den nye streng, når DNA-polymerase er nået til plads 12. Skriv den fra 5′-enden til 3′-enden.
- Hvor mange nucleotider sætter DNA-polymerase på fra plads 6 til plads 12, og hvor mange diphosphationer bliver der dannet imens?
- Hvad hedder den binding, der bliver dannet mellem den nye streng og hvert nyt nucleotid?
- Forklar, hvorfor den nye streng kun kan vokse i 3′-enden.
DNA-polymerase vælger det nucleotid, der passer til den næste base i skabelonstrengen: A over for T og G over for C. Gå frem i skabelonstrengen én plads ad gangen fra plads 6, og skriv den base, der passer.
På plads 6 har skabelonstrengen basen C. Den nye streng har 5′-enden til venstre i figuren, så du kan skrive dens baser af fra venstre mod højre.
Hver gang DNA-polymerase sætter et nucleotid på, forlader de to yderste phosphatgrupper nucleotidet.
Du kan begynde forklaringen sådan: “Det nye nucleotid bindes til den frie … på carbonatom …, som er nucleofilen. I 5′-enden af strengen sidder der …”
Nucleotidet på plads 6 har basen guanin, G. Skabelonstrengen har cytosin, C, på plads 6, og G parrer med C med tre hydrogenbindinger.
Den færdige nye streng er 5′-GCTAAGTCCGAT-3′.
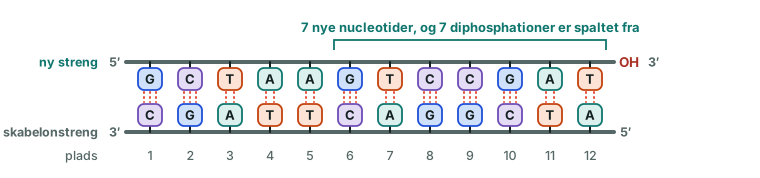
DNA-polymerase sætter 7 nucleotider på, ét på hver af pladserne 6 til 12. Hvert nucleotid afgiver sine to yderste phosphatgrupper, så der bliver dannet 7 diphosphationer.
Bindingen hedder en phosphodiesterbinding. Phosphatgruppen er bundet med en esterbinding til sukkeret på hver side.
Det nye nucleotid bindes til den frie OH-gruppe på carbonatom 3′, som er nucleofilen. I 5′-enden af strengen sidder der en phosphatgruppe og ingen fri OH-gruppe, så dér er der ingen nucleofil. Når nucleotidet er sat på, har strengen igen en fri OH-gruppe i 3′-enden, og den næste reaktion kan ske samme sted.
Opgave A7.5.4: Tre temperaturer
Figuren viser temperaturen i et PCR-apparat gennem én cyklus med trinene A, B og C. De to stiplede linjer viser smeltetemperaturen for det DNA-stykke, der skal kopieres, og smeltetemperaturen for primerne, når de sidder på en enkeltstreng.
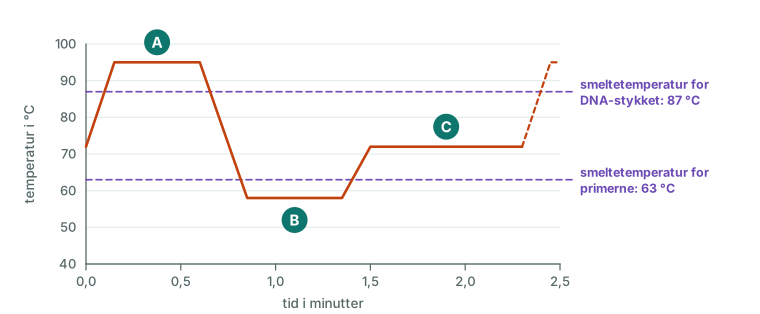
- Aflæs temperaturen i trin A, B og C.
- Beskriv, hvad der sker med DNA’et i hvert af de tre trin.
- Når to DNA-strenge skilles, er både ΔH og ΔS positive. Brug ΔG = ΔH − T · ΔS til at forklare, hvorfor de to strenge i DNA-stykket skilles i trin A, og hvorfor primerne bliver siddende på enkeltstrengene i trin B.
- I trin B kunne de to lange enkeltstrenge også finde sammen igen. Forklar, hvorfor det næsten altid er en primer, der når at sætte sig først.
- Trin C ligger over primernes smeltetemperatur. Alligevel falder de nye strenge ikke af skabelonstrengene. Foreslå en forklaring.
De tre trin i en PCR-cyklus står i tabellen under overskriften “Tre temperaturer” i afsnit A7.5. Sammenlign temperaturen i hvert trin med de to smeltetemperaturer i figuren: over smeltetemperaturen skilles strengene, og under smeltetemperaturen sidder de sammen.
I ΔG = ΔH − T · ΔS vokser leddet T · ΔS med temperaturen. Ved smeltetemperaturen er ΔG = 0 for adskillelsen af to DNA-strenge. Du kan begynde sådan: “I trin A er temperaturen … end smeltetemperaturen for DNA-stykket, så T · ΔS er … end ΔH, og ΔG for adskillelsen er …”
Til spørgsmål d: der er rigtig mange primere i glasset og kun få lange strenge.
Til spørgsmål e: DNA-polymerase arbejder også ved temperaturen i trin B, bare langsommere. Hvad sker der med smeltetemperaturen, når en kort streng bliver længere og får flere basepar?
Temperaturen er 95 °C i trin A, 58 °C i trin B og 72 °C i trin C.
I trin A skilles dobbeltstrengene til enkeltstrenge. I trin B sætter primerne sig på de steder på enkeltstrengene, hvor de passer. I trin C bygger DNA-polymerase videre fra primernes 3′-ende og laver hver enkeltstreng om til en dobbeltstreng.
Ved smeltetemperaturen er ΔG = 0 for adskillelsen af to DNA-strenge, fordi ΔH og T · ΔS er lige store.
I trin A er temperaturen 95 °C, og det er højere end smeltetemperaturen for DNA-stykket, som er 87 °C. Leddet T · ΔS er derfor større end ΔH, og ΔG for adskillelsen er negativ. Adskillelsen er spontan, og de to strenge skilles.
I trin B er temperaturen 58 °C, og det er lavere end primernes smeltetemperatur, som er 63 °C. Leddet T · ΔS er nu mindre end ΔH, og ΔG for adskillelsen af primer og enkeltstreng er positiv. Adskillelsen er ikke spontan, så primerne bliver siddende.
Der er rigtig mange primere i glasset, mens der kun er få af de lange enkeltstrenge. En enkeltstreng støder derfor meget oftere ind i en primer end i sin lange makker, og primeren når at sætte sig, længe før de to lange strenge finder hinanden.
DNA-polymerase arbejder også ved 58 °C, bare langsommere. Enzymet når derfor at sætte nucleotider på primeren i trin B, og mens temperaturen stiger. En længere streng holdes fast af flere basepar og dermed flere hydrogenbindinger, så der skal en højere temperatur til at skille den fra skabelonstrengen. Når temperaturen når 72 °C, er den nye streng allerede så lang, at den bliver siddende.
Opgave A7.5.5: Et enzym, der tåler 95 °C
I de første forsøg med PCR brugte man DNA-polymerase fra tarmbakterien E. coli, som arbejder bedst ved 37 °C. I dag bruges DNA-polymerase fra bakterien Thermus aquaticus, som lever i varme kilder. Den arbejder bedst ved 72 °C og tåler 95 °C.
Et protein holdes foldet af bindinger mellem sidekæderne. Tabellen viser fire par af sidekæder, som ligger tæt på hinanden i et foldet protein ved pH 7.
| Par | Den ene sidekæde | Den anden sidekæde |
|---|---|---|
| 1 | glutaminsyre (Glu), −COO− | lysin (Lys), −NH3+ |
| 2 | serin (Ser), −OH | asparagin (Asn), −CO−NH2 |
| 3 | valin (Val), −CH(CH3)2 | leucin (Leu), −CH2−CH(CH3)2 |
| 4 | asparaginsyre (Asp), −COO− | arginin (Arg), positivt ladet |
- Hvad sker der med DNA-polymerasen fra tarmbakterien, når blandingen varmes til 95 °C i første trin af en PCR-cyklus? Brug ordet denaturere.
- Angiv for hvert af de fire par den stærkeste binding, de to sidekæder kan danne med hinanden.
- Proteiner fra bakterier i varme kilder har ofte flere par som par 1 og par 4 end de tilsvarende proteiner fra andre bakterier. Forklar, hvorfor det gør DNA-polymerasen fra Thermus aquaticus bedre til at tåle varme.
- I de første forsøg med PCR skulle der tilsættes ny DNA-polymerase efter hver cyklus. Forklar hvorfor, og forklar, hvorfor det ikke er nødvendigt med DNA-polymerasen fra Thermus aquaticus.
- Peptidbindingerne i DNA-polymerasen fra tarmbakterien går ikke i stykker ved 95 °C. Forklar, hvorfor enzymet alligevel holder op med at virke.
Et enzym er et protein, som er foldet, så der dannes et aktivt center. Foldningen holdes på plads af svage bindinger mellem sidekæderne: ion-ionbindinger, hydrogenbindinger, dipol-dipolbindinger og londonbindinger. Læs om temperatur og denaturering i afsnit A6.1.
Stil de samme spørgsmål til hvert par af sidekæder: Er den ene positivt ladet og den anden negativt ladet? Har den ene et hydrogenatom på O eller N, og har den anden et O eller N? Er begge upolære?
Du kan begynde forklaringen i spørgsmål c sådan: “Par 1 og par 4 danner …, som er den … af de fire slags bindinger. Jo flere stærke bindinger der holder proteinet foldet, jo … temperatur skal der til, før …”
Til spørgsmål e: peptidbindinger er elektronparbindinger. Sammenlign deres styrke med de svage bindinger mellem sidekæderne.
Ved 95 °C ryster de svage bindinger, der holder DNA-polymerasen fra tarmbakterien foldet, fra hinanden. Enzymet denaturerer: det mister sin form, det aktive center forsvinder, og enzymet kan ikke længere binde skabelonstreng og nucleotider.
De stærkeste bindinger i de fire par er:
| Par | Sidekæder | Stærkeste binding |
|---|---|---|
| 1 | Glu og Lys | ion-ionbinding mellem −COO− og −NH3+ |
| 2 | Ser og Asn | hydrogenbinding mellem −OH og amidgruppen |
| 3 | Val og Leu | londonbindinger mellem de upolære carbonkæder |
| 4 | Asp og Arg | ion-ionbinding mellem −COO− og den positive gruppe |
Par 1 og par 4 danner ion-ionbindinger, som er den stærkeste af de fire slags bindinger mellem sidekæder. Jo flere stærke bindinger der holder DNA-polymerasen foldet, jo mere energi skal der til for at ryste dem fra hinanden. Enzymet fra Thermus aquaticus beholder derfor sin form ved en højere temperatur.
DNA-polymerasen fra tarmbakterien denaturerer, hver gang blandingen varmes til 95 °C, og et denatureret enzym får som regel ikke sin form igen, når det køles ned. Der skulle derfor tilsættes nyt enzym i hver cyklus, når blandingen var kølet ned igen. DNA-polymerasen fra Thermus aquaticus beholder sin form ved 95 °C, så det samme enzym kan arbejde i alle cyklusser.
Peptidbindingerne er elektronparbindinger, og de er meget stærkere end bindingerne mellem sidekæderne. Ved 95 °C er kæden af aminosyrer derfor stadig hel. Men enzymet virker kun, når kæden er foldet rigtigt, så sidekæderne i det aktive center sidder på deres pladser. Når de svage bindinger mellem sidekæderne brydes, går foldningen tabt, og dermed virker enzymet ikke.
Opgave A7.5.6: Skriv en primer
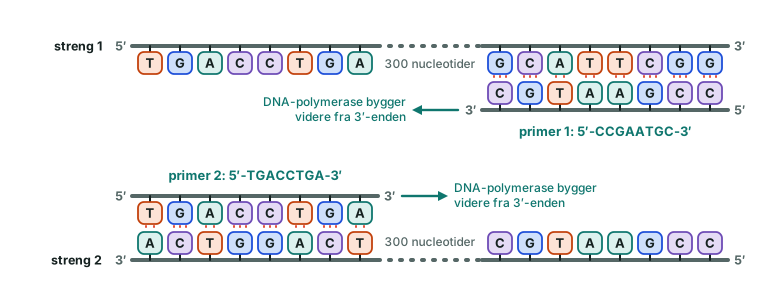
Et stykke DNA skal kopieres med PCR. Den ene af stykkets to strenge, streng 1, begynder og slutter sådan:
5′-TGACCTGA ··· GCATTCGG-3′
Prikkerne står for de 300 nucleotider i midten. For at gøre opgaven overskuelig er primerne i spørgsmål a til d kun 8 nucleotider lange.
For korte strenge kan smeltetemperaturen anslås med en tommelfingerregel:
\[ T_\mathrm{m} = 2\ \mathrm{°C} \cdot (\text{antal A og T}) + 4\ \mathrm{°C} \cdot (\text{antal G og C}) \]
- Primer 1 skal sætte sig på de 8 nucleotider i 3′-enden af streng 1. Skriv sekvensen for primer 1 fra 5′-enden til 3′-enden.
- Primer 2 skal sætte sig på 3′-enden af den komplementære streng, streng 2. Skriv sekvensen for primer 2 fra 5′-enden til 3′-enden.
- Forklar ud fra baseparrene, hvorfor G og C tæller mere end A og T i tommelfingerreglen for smeltetemperaturen.
- Beregn smeltetemperaturen for primer 1 med tommelfingerreglen, og forklar, hvorfor en primer på 8 nucleotider ikke kan bruges i en PCR.
- En rigtig primer har sekvensen 5′-CCGAATGCTAGGTCAGCTGA-3′. Beregn primerens smeltetemperatur, og vælg temperaturen i andet trin af PCR-cyklussen, når den skal ligge omkring 5 °C under primerens smeltetemperatur.
En primer er komplementær til det sted på strengen, hvor den skal sidde: A over for T og G over for C. De to strenge løber hver sin vej. Skriv derfor primerens baser under de 8 sidste baser i streng 1, og læs primeren fra højre mod venstre, så du får den fra 5′-enden til 3′-enden.
Under de 8 sidste baser i streng 1, GCATTCGG, står baserne CGTAAGCC. Læs dem bagfra.
Streng 2 er komplementær til hele streng 1. 3′-enden af streng 2 sidder derfor over for 5′-enden af streng 1, og primer 2 skal være komplementær til 3′-enden af streng 2. Hvad har en streng, der er komplementær til den komplementære streng, til fælles med streng 1?
Til smeltetemperaturen tæller du, hvor mange af primerens baser der er A eller T, og hvor mange der er G eller C. Et basepar af G og C holdes sammen af 3 hydrogenbindinger, og et basepar af A og T af 2.
- Primer 1 er komplementær til de 8 sidste baser i streng 1:
| streng 1: 5′ ··· | G | C | A | T | T | C | G | G | 3′ |
| primer 1: 3′ | C | G | T | A | A | G | C | C | 5′ |
Primeren læses fra 5′-enden, altså fra højre mod venstre. Primer 1 er 5′-CCGAATGC-3′.
- Streng 2 er komplementær til streng 1, og primer 2 er komplementær til 3′-enden af streng 2. Primer 2 har derfor samme sekvens som de 8 første baser i streng 1. Primer 2 er 5′-TGACCTGA-3′.
Et basepar af G og C holdes sammen af 3 hydrogenbindinger, og et basepar af A og T kun af 2. Der skal derfor mere energi til at skille et par af G og C, så ΔH for adskillelsen er større, og smeltetemperaturen bliver højere. I tommelfingerreglen tæller hvert G og C derfor mest.
Primer 1, 5′-CCGAATGC-3′, har 3 baser, der er A eller T, og 5 baser, der er G eller C.
\[ T_\mathrm{m} = 2\ \mathrm{°C} \cdot 3 + 4\ \mathrm{°C} \cdot 5 = 26\ \mathrm{°C} \]
Smeltetemperaturen for primer 1 er omkring 26 °C. Andet trin i en PCR-cyklus ligger omkring 55 °C, og det er langt over 26 °C, så en primer på 8 nucleotider ville ikke blive siddende på enkeltstrengen. En så kort sekvens findes desuden tilfældigt mange steder i et langt DNA-molekyle, så primeren ville ikke udpege ét bestemt stykke. Rigtige primere er derfor omkring 20 nucleotider lange.
- Primeren 5′-CCGAATGCTAGGTCAGCTGA-3′ har 9 baser, der er A eller T, og 11 baser, der er G eller C.
\[ T_\mathrm{m} = 2\ \mathrm{°C} \cdot 9 + 4\ \mathrm{°C} \cdot 11 = 62\ \mathrm{°C} \]
Primerens smeltetemperatur er omkring 62 °C. Andet trin i PCR-cyklussen skal ligge omkring 5 °C lavere, altså ved omkring 57 °C. Så er temperaturen lav nok til, at primeren bliver siddende, og høj nok til, at den kun sætter sig dér, hvor alle baser passer.
Opgave A7.5.7: Hvor mange kopier?
I en PCR fordobles antallet af DNA-molekyler i hver cyklus. Begynder man med N0 molekyler, er der N = N0 · 2n molekyler efter n cyklusser.
- En prøve indeholder 200 DNA-molekyler. Beregn antallet af molekyler efter 20 cyklusser.
- En anden prøve indeholder kun 12 DNA-molekyler. Beregn, hvor mange cyklusser der skal til, før prøven indeholder 5,0 · 109 molekyler.
- En tredje prøve indeholder 2,4 · 1010 DNA-molekyler efter 28 cyklusser. Beregn, hvor mange molekyler prøven indeholdt fra start.
- Beregn, hvor mange cyklusser der skal til for at gøre antallet af DNA-molekyler 1000 gange større.
Brug N = N0 · 2n i alle fire spørgsmål om antallet af DNA-molekyler. I spørgsmål a kender du N0 og n. I spørgsmål b kender du N og N0, og n er den ubekendte. I spørgsmål c kender du N og n.
Antallet af cyklusser n står i eksponenten, og den findes med logaritmer. Divider først med N0 på begge sider, så 2n står alene. Tag derefter logaritmen på begge sider, og brug, at log(2n) = n · log 2:
\[ n = \frac{\log\left( \dfrac{N}{N_0} \right)}{\log 2} \]
I spørgsmål d er N / N0 = 1000. I spørgsmål c isolerer du N0 ved at dividere N med 2n.
- Antallet af DNA-molekyler efter 20 cyklusser er
\[ N = N_0 \cdot 2^{n} = 200 \cdot 2^{20} = 2{,}1 \cdot 10^{8} \]
- Ligningen N = N0 · 2n løses for antallet af cyklusser n med N = 5,0 · 109 og N0 = 12:
\[ n = \frac{\log\left( \dfrac{5{,}0 \cdot 10^{9}}{12} \right)}{\log 2} = 28{,}6 \]
Efter 28 cyklusser er der 3,2 · 109 DNA-molekyler, og efter 29 cyklusser er der 6,4 · 109. Prøven når altså 5,0 · 109 molekyler i løbet af den 29. cyklus.
- Antallet af DNA-molekyler fra start findes ved at isolere N0:
\[ N_0 = \frac{N}{2^{n}} = \frac{2{,}4 \cdot 10^{10}}{2^{28}} = 89 \]
Prøven indeholdt omkring 89 DNA-molekyler fra start.
- Antallet af DNA-molekyler skal blive 1000 gange større, så 2n = 1000:
\[ n = \frac{\log 1000}{\log 2} = 9{,}97 \]
Der skal 10 cyklusser til, for 210 = 1024. Hver gang der er gået 10 cyklusser, er antallet af DNA-molekyler altså blevet omkring 1000 gange større.
Opgave A7.5.8: Hvor lang tid, og hvorfor stopper det?
I et PCR-apparat varer første trin 20 s, andet trin 30 s og tredje trin 45 s. Derudover bruger apparatet i alt 25 s på at skifte temperatur i hver cyklus.
Blandingen indeholder fra start 500 DNA-molekyler og 3,0 · 1012 primere af hver af de to slags. Hver ny streng begynder med en primer, og en kopi består af to strenge, som begynder med hver sin slags primer. Der kan derfor højst dannes 3,0 · 1012 kopier.
- Beregn, hvor lang tid én cyklus varer.
- Beregn, hvor lang tid 35 cyklusser varer.
- Beregn, hvor mange cyklusser der går, før primerne er brugt op, hvis antallet af DNA-molekyler fordobles i hver cyklus.
- Beregn det antal DNA-molekyler, som N = N0 · 2n giver efter 45 cyklusser, og sammenlign med det antal kopier, primerne rækker til.
- Forklar, hvorfor fordoblingen går i stå. Hvilket andet stof i blandingen bliver også brugt, hver gang der dannes en ny DNA-streng?
Læg tiderne for de tre trin og tiden til at skifte temperatur sammen, så har du tiden for én PCR-cyklus. Til spørgsmål c sætter du N = 3,0 · 1012 og N0 = 500 ind i N = N0 · 2n og finder antallet af cyklusser n med logaritmer.
Antallet af PCR-cyklusser findes som
\[ n = \frac{\log\left( \dfrac{N}{N_0} \right)}{\log 2} \]
Du kan begynde forklaringen i spørgsmål e sådan: “Hver ny DNA-streng bruger én … og mange … Når der ikke er flere …, kan DNA-polymerase ikke …, og antallet af kopier …”
- Én PCR-cyklus varer
\[ \text{tid for én cyklus} = 20\ \mathrm{s} + 30\ \mathrm{s} + 45\ \mathrm{s} + 25\ \mathrm{s} = 120\ \mathrm{s} \]
Det er 2,0 minutter.
- 35 PCR-cyklusser varer
\[ \text{tid for 35 cyklusser} = 35 \cdot 2{,}0\ \mathrm{min} = 70\ \mathrm{min} \]
Det er 1 time og 10 minutter.
- Primerne er brugt op, når der er dannet 3,0 · 1012 kopier. Ligningen N = N0 · 2n løses for antallet af cyklusser n med N = 3,0 · 1012 og N0 = 500:
\[ n = \frac{\log\left( \dfrac{3{,}0 \cdot 10^{12}}{500} \right)}{\log 2} = 32{,}5 \]
Primerne er brugt op i løbet af den 33. cyklus, altså efter lidt over en time.
- Efter 45 cyklusser giver modellen
\[ N = N_0 \cdot 2^{n} = 500 \cdot 2^{45} = 1{,}8 \cdot 10^{16} \]
Det er omkring 6000 gange flere DNA-molekyler, end primerne rækker til. Modellen N = N0 · 2n gælder altså kun, så længe der er rigeligt af primere.
- Hver ny DNA-streng bruger én primer og et nucleotid for hver base i strengen. Det andet stof, der bliver brugt, er altså nucleotiderne. Der er kun en bestemt mængde primere og nucleotider i blandingen fra start. Når de er ved at være brugt op, kan DNA-polymerase ikke længere lave en ny streng på hver enkeltstreng, og antallet af kopier holder op med at fordobles. Efter 30 til 40 cyklusser stiger antallet af kopier næsten ikke mere.
Opgaver i eksamensstil
Opgaverne ligner dem, du møder til den skriftlige prøve i kemi A. PCR er her rammen om spørgsmål i kernestoffet: mængdeberegning og lineære modeller, enzymkinetik og reaktioner af første orden, og Gibbs-energi og ligevægt.
Opgave A7.5.eks.1: En test for virus
Hepatitis B er en leversygdom, som skyldes et virus med DNA som arvemateriale. Mængden af virus i en blodprøve måles med PCR. I blandingen er der et farvestof, som lyser, når det sidder i dobbeltstrenget DNA. Apparatet måler lyset efter hver cyklus og beregner det antal cyklusser, nt, der skal til, før lyset når en fast grænse. Ved grænsen indeholder alle prøver det samme antal kopier, Nt. Apparatet regner mellem to målinger, så nt er ikke et helt tal.
Et laboratorium laver en standardkurve med seks standardprøver, hvor antallet af DNA-molekyler fra start, N0, er kendt.
| Standardprøve | N0 | nt |
|---|---|---|
| 1 | 1,0 · 102 | 30,8 |
| 2 | 1,0 · 103 | 27,6 |
| 3 | 1,0 · 104 | 24,1 |
| 4 | 1,0 · 105 | 20,8 |
| 5 | 1,0 · 106 | 17,3 |
| 6 | 1,0 · 107 | 14,2 |
- Standardprøve 5 har rumfanget 5,0 µL. Beregn stofmængden af DNA i standardprøve 5, og beregn koncentrationen af DNA i prøven i mol/L.
- Vis, at nt er en lineær funktion af log N0, og opskriv modellen.
- Blodprøver fra to patienter giver nt = 19,3 for patient A og nt = 26,0 for patient B. Bestem antallet af DNA-molekyler fra virus i hver af de to prøver, og beregn, hvor mange gange mere virus der er i den ene prøve end i den anden.
- Antallet af kopier bliver f gange større i hver cyklus, så \(N_\mathrm{t} = N_0 \cdot f^{n_\mathrm{t}}\) ved grænsen. Bestem f ud fra standardkurvens hældning, og vurdér, om antallet af kopier fordobles i hver cyklus.
Til spørgsmål a: et mol er 6,02 · 1023 molekyler, og 5,0 µL = 5,0 · 10−6 L.
Til spørgsmål b: fordobles antallet af kopier i hver cyklus, er \(N_\mathrm{t} = N_0 \cdot 2^{n_\mathrm{t}}\). Tag logaritmen på begge sider, og isolér nt. Beregn derefter log N0 for hver standardprøve, afbild nt som funktion af log N0, og lav lineær regression. Besvarelsen skal have grafen med punkter og linje, modellen med symboler og en vurdering af, hvordan punkterne ligger.
For standardprøverne er log N0 = 2,00, 3,00 og så videre op til 7,00. Regressionen giver en hældning tæt på −3,3.
Til spørgsmål c løser du modellen for log N0 og sætter patientens nt ind. Antallet af DNA-molekyler er 10 opløftet til resultatet.
Til spørgsmål d: tager du logaritmen på begge sider af \(N_\mathrm{t} = N_0 \cdot f^{n_\mathrm{t}}\) og isolerer nt, bliver hældningen −1 / log f. Du kan begynde vurderingen sådan: “Hældningen giver f = …, og en fordobling svarer til f = …, så …”
- Et mol er 6,02 · 1023 molekyler, så stofmængden af DNA i standardprøve 5 er
\[ n(\mathrm{DNA}) = \frac{1{,}0 \cdot 10^{6}}{6{,}02 \cdot 10^{23}\ \mathrm{mol^{-1}}} = 1{,}66 \cdot 10^{-18}\ \mathrm{mol} \]
Rumfanget er 5,0 µL = 5,0 · 10−6 L.
\[ c = \frac{n(\mathrm{DNA})}{V} = \frac{1{,}66 \cdot 10^{-18}\ \mathrm{mol}}{5{,}0 \cdot 10^{-6}\ \mathrm{L}} = 3{,}3 \cdot 10^{-13}\ \mathrm{M} \]
Standardprøve 5 indeholder 1,66 · 10−18 mol DNA, og koncentrationen er 3,3 · 10−13 M. PCR kan altså måle koncentrationer, der er langt lavere end dem, et spektrofotometer kan måle.
- Udtrykket, der skal undersøges
Fordobles antallet af kopier i hver cyklus, er \(N_\mathrm{t} = N_0 \cdot 2^{n_\mathrm{t}}\) ved grænsen. Logaritmen tages på begge sider, og nt isoleres:
\[ \log N_\mathrm{t} = \log N_0 + n_\mathrm{t} \cdot \log 2 \qquad\Rightarrow\qquad n_\mathrm{t} = -\frac{1}{\log 2} \cdot \log N_0 + \frac{\log N_\mathrm{t}}{\log 2} \]
Nt er den samme for alle prøver. Derfor skal nt være en lineær funktion af log N0 med en negativ hældning, og log N0 beregnes for hver standardprøve.
| log N0 | 2,00 | 3,00 | 4,00 | 5,00 | 6,00 | 7,00 |
|---|---|---|---|---|---|---|
| nt | 30,8 | 27,6 | 24,1 | 20,8 | 17,3 | 14,2 |
Graf og regression
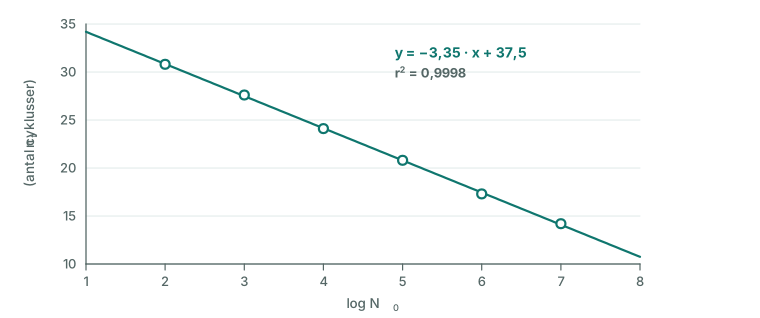
Lineær regression giver y = −3,35 · x + 37,5. Med symboler er modellen
\[ n_\mathrm{t} = -3{,}35 \cdot \log N_0 + 37{,}5 \]
Vurdering af modellen
Punkterne ligger tæt på linjen og fordeler sig tilfældigt over og under den. Forklaringsgraden er r2 = 0,9998. Modellen beskriver målingerne godt, så nt er en lineær funktion af log N0.
- Modellen løses for log N0, og nt = 19,3 for patient A sættes ind:
\[ \log N_0 = \frac{37{,}5 - n_\mathrm{t}}{3{,}35} = \frac{37{,}5 - 19{,}3}{3{,}35} = 5{,}43 \]
\[ N_0 = 10^{5{,}43} = 2{,}7 \cdot 10^{5} \]
For patient B er nt = 26,0:
\[ \log N_0 = \frac{37{,}5 - 26{,}0}{3{,}35} = 3{,}43 \]
\[ N_0 = 10^{3{,}43} = 2{,}7 \cdot 10^{3} \]
Prøven fra patient A indeholder 2,7 · 105 DNA-molekyler fra virus, og prøven fra patient B indeholder 2,7 · 103. Forholdet er
\[ \frac{N_0(\text{A})}{N_0(\text{B})} = \frac{2{,}7 \cdot 10^{5}}{2{,}7 \cdot 10^{3}} = 100 \]
Der er 100 gange mere virus i prøven fra patient A, selv om forskellen kun er 6,7 cyklusser.
- Logaritmen tages på begge sider af \(N_\mathrm{t} = N_0 \cdot f^{n_\mathrm{t}}\), og nt isoleres:
\[ n_\mathrm{t} = -\frac{1}{\log f} \cdot \log N_0 + \frac{\log N_\mathrm{t}}{\log f} \]
Hældningen er altså −1 / log f. Standardkurvens hældning er −3,35, så
\[ \log f = \frac{1}{3{,}35} = 0{,}299 \]
\[ f = 10^{0{,}299} = 1{,}99 \]
Antallet af kopier bliver 1,99 gange større i hver cyklus. En fordobling svarer til f = 2 og til hældningen −1 / log 2 = −3,32. Den fundne hældning ligger meget tæt på, så antallet af kopier fordobles i praksis i hver cyklus, så længe der er rigeligt af primere og nucleotider.
Opgave A7.5.eks.2: Enzymet fra de varme kilder
DNA-polymerasen i PCR stammer fra bakterien Thermus aquaticus, som lever i varme kilder. I et forsøg ved 72 °C måles starthastigheden v for den reaktion, hvor enzymet sætter nucleotider på en ny DNA-streng. Skabelonstrengen indeholder kun basen thymin, så enzymet bruger kun nucleotidet med basen adenin og tre phosphatgrupper. Koncentrationen af enzym er den samme i alle målinger.
| [nucleotid] i µM | 2,0 | 5,0 | 10 | 20 | 40 | 80 | 160 |
|---|---|---|---|---|---|---|---|
| v i µM/min | 4,5 | 9,5 | 15,0 | 21,0 | 26,7 | 30,6 | 33,5 |
- Angiv, hvilket stof der er substrat i forsøget, og forklar ud fra tabellen, at enzymet er ved at være mættet ved de højeste koncentrationer af nucleotid.
- Undersøg, om målingerne følger Michaelis-Menten-ligningen, og bestem vmax og KM.
- I en PCR-blanding er koncentrationen af hvert nucleotid 200 µM fra start. Beregn starthastigheden ved denne koncentration i procent af vmax, og vurdér, om reaktionen er nærmest af første eller af nulte orden med hensyn til nucleotidet.
- Ved 95 °C denaturerer enzymet langsomt. Denatureringen er af første orden med en halveringstid på 40 min. I en PCR med 30 cyklusser er blandingen 30 s ved 95 °C i hver cyklus. Beregn, hvor mange procent af enzymet der stadig er aktivt efter de 30 cyklusser.
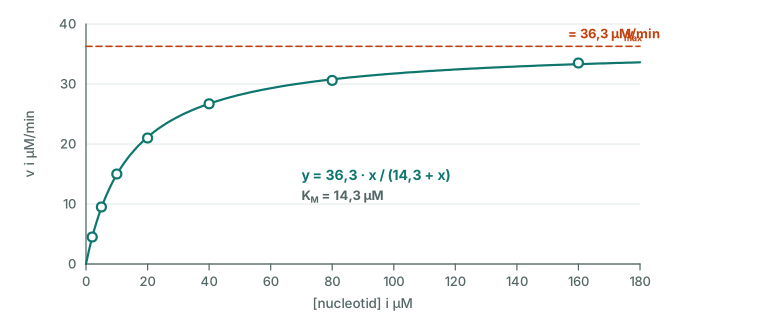
Til spørgsmål a sammenligner du, hvor meget starthastigheden stiger, når koncentrationen af nucleotid fordobles ved lave og ved høje koncentrationer. Til spørgsmål b skriver du Michaelis-Menten-ligningen op med [nucleotid], afbilder v som funktion af [nucleotid] og tilpasser modellen y = a · x / (b + x) i et CAS-værktøj.
Regressionen for DNA-polymerasen giver a = 36,3 og b = 14,3. Husk grafen med punkter og model og en sætning om, hvordan punkterne ligger i forhold til kurven.
Til spørgsmål c sammenligner du 200 µM med KM. Du kan begynde sådan: “Koncentrationen af nucleotid er omkring … gange større end KM, så enzymet er næsten …, og reaktionen er nærmest af … orden.”
Til spørgsmål d: enzymet er i alt 30 · 30 s ved 95 °C. For en reaktion af første orden er k = ln 2 / t½, og den del, der er tilbage, er \(e^{-k \cdot t}\).
- Substratet er nucleotidet med basen adenin og tre phosphatgrupper. Det er det stof, enzymet binder og omdanner, og det er dets koncentration, der ændres i forsøget. Den nye streng, som nucleotidet sættes på, er også et substrat, men dens koncentration er den samme i alle målinger.
Ved de laveste koncentrationer stiger starthastigheden meget: fra 5,0 µM til 10 µM nucleotid stiger den fra 9,5 til 15,0 µM/min. Ved de højeste koncentrationer stiger den kun lidt: fra 80 µM til 160 µM nucleotid stiger den fra 30,6 til 33,5 µM/min, selv om koncentrationen fordobles. Næsten alle enzymmolekyler er optaget af et nucleotid, så enzymet er ved at være mættet.
- Udtrykket, der skal undersøges
\[ v = \frac{v_\mathrm{max} \cdot [\mathrm{nucleotid}]}{K_\mathrm{M} + [\mathrm{nucleotid}]} \]
Graf og regression
Regression med modellen y = a · x / (b + x) giver a = 36,3 og b = 14,3.
Vurdering af modellen
Punkterne ligger tæt på kurven og tilfældigt over og under den. Målingerne for DNA-polymerasen følger Michaelis-Menten-ligningen.
Konklusion
vmax = 36,3 µM/min og KM = 14,3 µM. Modellen er
\[ v = \frac{36{,}3\ \dfrac{\mathrm{\mu M}}{\mathrm{min}} \cdot [\mathrm{nucleotid}]}{14{,}3\ \mathrm{\mu M} + [\mathrm{nucleotid}]} \]
- Ved [nucleotid] = 200 µM giver modellen
\[ v = \frac{36{,}3\ \dfrac{\mathrm{\mu M}}{\mathrm{min}} \cdot 200\ \mathrm{\mu M}}{14{,}3\ \mathrm{\mu M} + 200\ \mathrm{\mu M}} = 33{,}9\ \dfrac{\mathrm{\mu M}}{\mathrm{min}} \]
\[ \frac{v}{v_\mathrm{max}} = \frac{33{,}9\ \dfrac{\mathrm{\mu M}}{\mathrm{min}}}{36{,}3\ \dfrac{\mathrm{\mu M}}{\mathrm{min}}} = 0{,}93 = 93\ \% \]
Koncentrationen af nucleotid er 14 gange større end KM, og DNA-polymerasen arbejder med 93 % af vmax. Enzymet er næsten mættet, så hastigheden afhænger kun lidt af [nucleotid]. Reaktionen er derfor nærmest af nulte orden med hensyn til nucleotidet. Først når nucleotiderne er ved at være brugt op sidst i en PCR, og koncentrationen kommer ned omkring KM, falder hastigheden for alvor.
- Enzymet er ved 95 °C i 30 s i hver af de 30 cyklusser, altså 900 s i alt, og det er 15 min. Hastighedskonstanten for denatureringen er
\[ k = \frac{\ln 2}{t_{\frac{1}{2}}} = \frac{\ln 2}{40\ \mathrm{min}} = 0{,}0173\ \mathrm{min^{-1}} \]
For en reaktion af første orden er den del af enzymet, der stadig er aktivt,
\[ \frac{[\mathrm{enzym}]}{[\mathrm{enzym}]_0} = e^{-k \cdot t} = e^{-0{,}0173\ \mathrm{min^{-1}} \cdot 15\ \mathrm{min}} = 0{,}77 \]
Efter 30 cyklusser er 77 % af DNA-polymerasen stadig aktiv. De 15 minutter er mindre end en halv halveringstid, så det meste af enzymet overlever hele PCR-forløbet. Det er grunden til, at netop dette enzym kan bruges.
Opgave A7.5.eks.3: Diphosphat trækker reaktionen
Hver gang DNA-polymerase sætter et nucleotid på en DNA-streng, bliver der fraspaltet en diphosphation, P2O74−. Påsætningen er en ligevægt:
DNA-streng + nucleotid ⇌ DNA-streng med ét nucleotid mere + diphosphat
Er der meget diphosphat i blandingen, kan DNA-polymerase også katalysere reaktionen mod venstre. Celler har derfor et andet enzym, som får diphosphat til at reagere med vand, og det enzym kan også tilsættes en PCR-blanding. Der dannes hydrogenphosphationer. Reaktionsskemaet er ikke afstemt:
P2O74−(aq) + H2O(l) → HPO42−(aq)
For den afstemte reaktion mellem diphosphat og vand er ΔG⊖ = −19 kJ/mol ved 25 °C.
- Afstem reaktionsskemaet for reaktionen mellem diphosphat og vand, og angiv reaktionstypen.
- Beregn ligevægtskonstanten for reaktionen mellem diphosphat og vand ved 25 °C.
- I en blanding ved 25 °C er [P2O74−] = 2,0 · 10−5 M og [HPO42−] = 1,0 · 10−3 M. Beregn ΔG for blandingen, og afgør, hvilken vej reaktionen mellem diphosphat og vand forløber.
- Uden enzym er reaktionen mellem diphosphat og vand meget langsom. Forklar, hvad enzymet ændrer ved reaktionen, og hvad det ikke ændrer. Forklar derefter, hvordan reaktionen mellem diphosphat og vand påvirker ligevægten for påsætningen af nucleotider.
Tæl phosphoratomerne på begge sider, når du afstemmer reaktionen mellem diphosphat og vand, og tjek bagefter oxygen, hydrogen og ladning. Reaktionstyperne står i afsnit A3.3. Til spørgsmål b bruger du sammenhængen mellem ΔG⊖ og ligevægtskonstanten fra afsnit A2.5: ln K = −ΔG⊖ / (R · T).
Regn ΔG⊖ for reaktionen mellem diphosphat og vand om til joule, og brug T = (273 + 25) K = 298 K og R = 8,314 J/(mol · K).
Til spørgsmål c beregner du først reaktionsbrøken Y. Vand er opløsningsmidlet og indgår ikke. Derefter er ΔG = ΔG⊖ + R · T · ln Y.
Du kan begynde forklaringen i spørgsmål d sådan: “Enzymet er en katalysator. Det sænker …, så reaktionen går …, men det ændrer ikke … Når diphosphat bliver fjernet, bliver reaktionsbrøken for påsætningen … end ligevægtskonstanten, og ligevægten forskydes mod …”
- Der er to phosphoratomer i en diphosphation, så der dannes to hydrogenphosphationer:
P2O74−(aq) + H2O(l) → 2 HPO42−(aq)
Der er 2 P, 8 O og 2 H på hver side, og ladningen er −4 på begge sider. Diphosphationen bliver delt i to, og vand er en reaktant. Reaktionen er derfor en hydrolyse.
- ΔG⊖ for hydrolysen af diphosphat regnes om til joule: −19 kJ/mol = −19 000 J/mol. Temperaturen er T = (273 + 25) K = 298 K.
\[ \ln K = -\frac{\Delta G^{\ominus}}{R \cdot T} = -\frac{-19\,000\ \dfrac{\mathrm{J}}{\mathrm{mol}}}{8{,}314\ \dfrac{\mathrm{J}}{\mathrm{mol \cdot K}} \cdot 298\ \mathrm{K}} = 7{,}669 \]
\[ K = e^{7{,}669} = 2{,}1 \cdot 10^{3} \]
Ligevægtskonstanten for hydrolysen af diphosphat er 2,1 · 103 ved 25 °C. Den er meget større end 1, så ligevægten er forskudt langt mod højre.
- Reaktionsbrøken for hydrolysen af diphosphat er
\[ Y = \frac{[\mathrm{HPO_4^{2-}}]^{2}}{[\mathrm{P_2O_7^{4-}}]} = \frac{(1{,}0 \cdot 10^{-3})^{2}}{2{,}0 \cdot 10^{-5}} = 0{,}050 \]
Gaskonstanten regnes om til kJ: R = 8,314 · 10−3 kJ/(mol · K).
\[ \Delta G = \Delta G^{\ominus} + R \cdot T \cdot \ln Y = -19\ \dfrac{\mathrm{kJ}}{\mathrm{mol}} + 8{,}314 \cdot 10^{-3}\ \dfrac{\mathrm{kJ}}{\mathrm{mol \cdot K}} \cdot 298\ \mathrm{K} \cdot \ln(0{,}050) = -26{,}4\ \dfrac{\mathrm{kJ}}{\mathrm{mol}} \]
ΔG = −26,4 kJ/mol for blandingen. Den er negativ, så hydrolysen af diphosphat forløber mod højre. Det passer med, at reaktionsbrøken 0,050 er meget mindre end ligevægtskonstanten 2,1 · 103.
- Enzymet er en katalysator. Det sænker aktiveringsenergien for hydrolysen af diphosphat, så reaktionen går meget hurtigere. Enzymet ændrer ikke ΔG⊖ og dermed heller ikke ligevægtskonstanten: ligevægten ligger samme sted, den bliver bare nået hurtigere. At en reaktion er spontan, siger ikke noget om, hvor hurtigt den går.
Diphosphat er et produkt i påsætningen af nucleotider. Når hydrolysen fjerner diphosphat, bliver reaktionsbrøken for påsætningen mindre end ligevægtskonstanten, og ligevægten forskydes mod højre. Det er Le Chateliers princip fra afsnit B2.5: fjerner man et produkt, forskydes ligevægten i den retning, hvor produktet bliver dannet. Fordi ligevægtskonstanten for hydrolysen er stor, bliver næsten al diphosphat fjernet, og DNA-strengen bliver ved med at vokse.