Opgaver til A6.2
Opgaverne hører til afsnit A6.2 Enzymkinetik. Prøv selv, før du åbner hjælpen under opgaven. Til opgave A6.2.6 og A6.2.7 og til opgaverne i eksamensstil skal du bruge et CAS-værktøj eller et regneark.
Opgave A6.2.1: Pepsin bliver mættet
Enzymet pepsin spalter proteiner i mavesækken. I et forsøg måles starthastigheden v for spaltningen af et protein med pepsin i en række glas. Koncentrationen af protein er forskellig fra glas til glas, men der er lige meget pepsin i dem alle. Ved lave koncentrationer af protein stiger starthastigheden næsten proportionalt med koncentrationen. Ved høje koncentrationer stiger den næsten ikke.
- Forklar, hvorfor starthastigheden stiger, når koncentrationen af protein stiger fra en lav værdi.
- Forklar, hvorfor starthastigheden næsten ikke stiger ved høje koncentrationer af protein. Brug ordene enzym-substrat-kompleks og mættet.
- Hvad kaldes den hastighed, som kurven for pepsin nærmer sig ved høje koncentrationer af protein?
- Pepsin er mættet med protein. Hvad kan man gøre for at få spaltningen til at gå hurtigere?
Tænk på pepsinmolekylerne som kasserne i et supermarked. Hver kasse kan kun betjene én kunde ad gangen, og hvert pepsinmolekyle kan kun arbejde på ét proteinmolekyle ad gangen. Hvor mange pepsinmolekyler er ledige, når der er lidt protein? Og når der er meget?
Du kan begynde sådan: “Ved en lav koncentration af protein er de fleste pepsinmolekyler … Kommer der mere protein, dannes der flere … pr. sekund, og starthastigheden …”
Og sådan: “Ved en høj koncentration af protein sidder der hele tiden et proteinmolekyle i hvert … Pepsin er …, og mere protein kan ikke …”
Ved en lav koncentration af protein er de fleste pepsinmolekyler ledige. Kommer der mere protein, rammer flere proteinmolekyler et ledigt aktivt center, og der dannes flere enzym-substrat-komplekser pr. sekund. Derfor stiger starthastigheden.
Der er kun et bestemt antal pepsinmolekyler, og hvert af dem kan kun arbejde på ét proteinmolekyle ad gangen. Ved en høj koncentration af protein sidder der hele tiden et proteinmolekyle i hvert aktivt center. Alle pepsinmolekyler er bundet i enzym-substrat-komplekser, og pepsin er mættet. Mere protein kan ikke få pepsinmolekylerne til at arbejde hurtigere, så starthastigheden stiger næsten ikke.
Hastigheden kaldes maksimalhastigheden, vmax.
Man kan tilsætte mere pepsin. Dobbelt så meget pepsin giver dobbelt så mange aktive centre og dermed dobbelt så høj vmax. Mere protein hjælper ikke, når pepsin er mættet.
Opgave A6.2.2: Aflæsning på en Michaelis-Menten-kurve
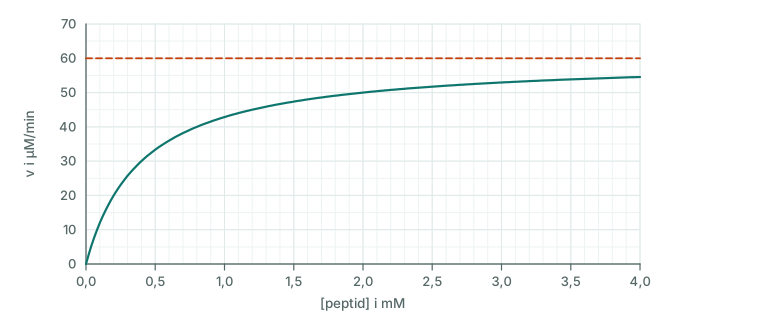
Enzymet trypsin spalter proteiner i tyndtarmen. I et forsøg er starthastigheden v målt for spaltningen af et lille peptid med trypsin. Figuren viser Michaelis-Menten-kurven for forsøget. Den stiplede linje viser den hastighed, kurven nærmer sig.
- Aflæs maksimalhastigheden vmax for trypsin i forsøget.
- Beregn halvdelen af vmax, og aflæs Michaelis-konstanten KM.
- Opskriv Michaelis-Menten-ligningen for forsøget med de to aflæste værdier sat ind, og kontrollér ligningen ved [peptid] = 1,2 mM.
- Forsøget gentages med dobbelt så meget trypsin. Angiv vmax og KM i det nye forsøg.
vmax er den hastighed, kurven for trypsin nærmer sig, altså den stiplede linje. KM er den koncentration af peptid, hvor starthastigheden er halvdelen af vmax.
Den stiplede linje i figuren for trypsin ligger ved 60 µM/min, og halvdelen er 30 µM/min. Find 30 på y-aksen, gå vandret ud til kurven og derfra lodret ned til x-aksen. Til spørgsmål d: vmax afhænger af mængden af trypsin, men det gør KM ikke.
Kurven for trypsin nærmer sig den stiplede linje ved 60 µM/min, så vmax = 60 µM/min.
Halvdelen af vmax er 30 µM/min. Kurven når 30 µM/min ved [peptid] = 0,40 mM, så KM = 0,40 mM.
Michaelis-Menten-ligningen for trypsin i forsøget er
\[ v = \frac{60\ \dfrac{\mathrm{\mu M}}{\mathrm{min}} \cdot [\mathrm{peptid}]}{0{,}40\ \mathrm{mM} + [\mathrm{peptid}]} \]
Kontrol ved [peptid] = 1,2 mM:
\[ v = \frac{60\ \dfrac{\mathrm{\mu M}}{\mathrm{min}} \cdot 1{,}2\ \mathrm{mM}}{0{,}40\ \mathrm{mM} + 1{,}2\ \mathrm{mM}} = 45\ \dfrac{\mathrm{\mu M}}{\mathrm{min}} \]
Det passer med figuren, hvor kurven går gennem 45 µM/min ved 1,2 mM.
- Dobbelt så meget trypsin giver dobbelt så høj maksimalhastighed, så vmax = 120 µM/min. KM hører til enzymet og substratet og afhænger ikke af mængden af enzym, så KM er stadig 0,40 mM.
Opgave A6.2.3: Regn med Michaelis-Menten-ligningen
Nogle bakterier er resistente over for penicillin, fordi de danner enzymet penicillinase. Enzymet ødelægger penicillin, før det når at virke. I et forsøg med penicillinase og penicillin er vmax = 84 µM/min og KM = 50 µM.
- Beregn starthastigheden, når [penicillin] = 20 µM.
- Beregn starthastigheden, når [penicillin] = 50 µM, og sammenlign resultatet med vmax.
- Beregn starthastigheden, når [penicillin] = 450 µM, og angiv, hvor mange procent af vmax den udgør.
- Beregn den koncentration af penicillin, der giver starthastigheden 63 µM/min.
Sæt tallene for penicillinase ind i Michaelis-Menten-ligningen, v = vmax · [penicillin] / (KM + [penicillin]). Læg mærke til, at KM og [penicillin] begge står i µM. I spørgsmål d er det koncentrationen af penicillin, der er ukendt.
I spørgsmål a er v = 84 µM/min · 20 µM / (50 µM + 20 µM). I spørgsmål b er [penicillin] lig med KM.
I spørgsmål d er ligningen v = 84 · x / (50 + x) = 63. x angiver her koncentrationen af penicillin målt i µM. Gang med (50 + x) på begge sider, og saml leddene med x på den ene side.
Kendte størrelser for penicillinase: vmax = 84 µM/min og KM = 50 µM.
\[ v = \frac{v_\mathrm{max} \cdot [\mathrm{penicillin}]}{K_\mathrm{M} + [\mathrm{penicillin}]} \]
- Ved [penicillin] = 20 µM er
\[ v = \frac{84\ \dfrac{\mathrm{\mu M}}{\mathrm{min}} \cdot 20\ \mathrm{\mu M}}{50\ \mathrm{\mu M} + 20\ \mathrm{\mu M}} = 24\ \dfrac{\mathrm{\mu M}}{\mathrm{min}} \]
- Ved [penicillin] = 50 µM er
\[ v = \frac{84\ \dfrac{\mathrm{\mu M}}{\mathrm{min}} \cdot 50\ \mathrm{\mu M}}{50\ \mathrm{\mu M} + 50\ \mathrm{\mu M}} = 42\ \dfrac{\mathrm{\mu M}}{\mathrm{min}} \]
Det er præcis halvdelen af vmax. Sådan er det altid, når koncentrationen af substrat er lig med KM.
- Ved [penicillin] = 450 µM er
\[ v = \frac{84\ \dfrac{\mathrm{\mu M}}{\mathrm{min}} \cdot 450\ \mathrm{\mu M}}{50\ \mathrm{\mu M} + 450\ \mathrm{\mu M}} = 75{,}6\ \dfrac{\mathrm{\mu M}}{\mathrm{min}} \]
\[ \frac{v}{v_\mathrm{max}} = \frac{75{,}6\ \dfrac{\mathrm{\mu M}}{\mathrm{min}}}{84\ \dfrac{\mathrm{\mu M}}{\mathrm{min}}} = 0{,}90 = 90\ \% \]
Koncentrationen af penicillin er 9 gange så stor som KM, og penicillinase arbejder med 90 % af vmax.
- x angiver her koncentrationen af penicillin målt i µM. Enhederne er udeladt i ligningen.
\[ v = \frac{84 \cdot x}{50 + x} = 63 \]
\[ 84 \cdot x = 63 \cdot (50 + x) \]
\[ 84 \cdot x = 3150 + 63 \cdot x \]
\[ 21 \cdot x = 3150 \]
\[ x = \frac{3150}{21} = 150 \]
Starthastigheden er 63 µM/min, når [penicillin] = 150 µM. 63 µM/min er 75 % af vmax, og det kræver en koncentration på 3 gange KM.
Opgave A6.2.4: Første eller nulte orden?
Enzymet carboanhydrase findes i de røde blodlegemer. Det omdanner carbondioxid til hydrogencarbonat, så blodet kan føre carbondioxid til lungerne:
CO2(aq) + 2 H2O(l) ⇌ HCO3−(aq) + H3O+(aq)
Med carbondioxid som substrat har carboanhydrase KM = 12 mM. I et forsøg med en lille mængde carboanhydrase er vmax = 0,60 mM/s.
- I blodet er [CO2] omkring 1,2 mM. Sammenlign koncentrationen med KM, og angiv, hvilken orden reaktionen tilnærmelsesvis har med hensyn til CO2.
- Beregn starthastigheden ved [CO2] = 1,2 mM, først med Michaelis-Menten-ligningen og derefter med tilnærmelsen v ≈ vmax / KM · [CO2].
- Carboanhydrase findes også på tungen, hvor enzymet er med til, at vi kan smage brusen i danskvand. I en nyåbnet danskvand er [CO2] omkring 150 mM. Sammenlign koncentrationen med KM, angiv reaktionens orden med hensyn til CO2, og beregn starthastigheden.
- Hvor mange gange større bliver starthastigheden, når [CO2] fordobles fra 1,2 mM til 2,4 mM? Og når [CO2] fordobles fra 150 mM til 300 mM?
Sammenlign [CO2] med KM for carboanhydrase. Er koncentrationen af substrat meget mindre end KM, er reaktionen tilnærmelsesvis af første orden. Er den meget større end KM, er reaktionen tilnærmelsesvis af nulte orden.
1,2 mM er 10 gange mindre end KM = 12 mM for carboanhydrase, og 150 mM er over 12 gange større. Ved 1,2 mM er v = 0,60 mM/s · 1,2 mM / (12 mM + 1,2 mM), og tilnærmelsen giver 0,60 mM/s / 12 mM · 1,2 mM. Til spørgsmål d beregner du også starthastigheden ved 2,4 mM og ved 300 mM og dividerer den nye hastighed med den gamle.
Kendte størrelser for carboanhydrase: vmax = 0,60 mM/s og KM = 12 mM.
1,2 mM er 10 gange mindre end KM. Når [CO2] er meget mindre end KM, betyder [CO2] næsten intet i nævneren i Michaelis-Menten-ligningen, og hastigheden er proportional med [CO2]. Reaktionen er tilnærmelsesvis af første orden med hensyn til CO2.
Med Michaelis-Menten-ligningen:
\[ v = \frac{0{,}60\ \dfrac{\mathrm{mM}}{\mathrm{s}} \cdot 1{,}2\ \mathrm{mM}}{12\ \mathrm{mM} + 1{,}2\ \mathrm{mM}} = 0{,}055\ \dfrac{\mathrm{mM}}{\mathrm{s}} \]
Med tilnærmelsen:
\[ v \approx \frac{v_\mathrm{max}}{K_\mathrm{M}} \cdot [\mathrm{CO_2}] = \frac{0{,}60\ \dfrac{\mathrm{mM}}{\mathrm{s}}}{12\ \mathrm{mM}} \cdot 1{,}2\ \mathrm{mM} = 0{,}060\ \dfrac{\mathrm{mM}}{\mathrm{s}} \]
Tilnærmelsen giver 10 % for meget. Den bliver bedre, jo mindre [CO2] er i forhold til KM.
- 150 mM er 12,5 gange større end KM for carboanhydrase. Når [CO2] er meget større end KM, betyder KM næsten intet i nævneren, og hastigheden er tæt på vmax. Reaktionen er tilnærmelsesvis af nulte orden med hensyn til CO2.
\[ v = \frac{0{,}60\ \dfrac{\mathrm{mM}}{\mathrm{s}} \cdot 150\ \mathrm{mM}}{12\ \mathrm{mM} + 150\ \mathrm{mM}} = 0{,}56\ \dfrac{\mathrm{mM}}{\mathrm{s}} \]
Det er 93 % af vmax. Carboanhydrase er næsten mættet med CO2.
- Ved [CO2] = 2,4 mM er
\[ v = \frac{0{,}60\ \dfrac{\mathrm{mM}}{\mathrm{s}} \cdot 2{,}4\ \mathrm{mM}}{12\ \mathrm{mM} + 2{,}4\ \mathrm{mM}} = 0{,}10\ \dfrac{\mathrm{mM}}{\mathrm{s}} \]
\[ \frac{v(2{,}4\ \mathrm{mM})}{v(1{,}2\ \mathrm{mM})} = \frac{0{,}10\ \dfrac{\mathrm{mM}}{\mathrm{s}}}{0{,}055\ \dfrac{\mathrm{mM}}{\mathrm{s}}} = 1{,}8 \]
Ved [CO2] = 300 mM er
\[ v = \frac{0{,}60\ \dfrac{\mathrm{mM}}{\mathrm{s}} \cdot 300\ \mathrm{mM}}{12\ \mathrm{mM} + 300\ \mathrm{mM}} = 0{,}58\ \dfrac{\mathrm{mM}}{\mathrm{s}} \]
\[ \frac{v(300\ \mathrm{mM})}{v(150\ \mathrm{mM})} = \frac{0{,}58\ \dfrac{\mathrm{mM}}{\mathrm{s}}}{0{,}56\ \dfrac{\mathrm{mM}}{\mathrm{s}}} = 1{,}04 \]
Ved den lave koncentration bliver starthastigheden 1,8 gange større, altså næsten dobbelt så stor, som den skal ved første orden. Ved den høje koncentration bliver den kun 1,04 gange større. Den er næsten uændret, som den skal være ved nulte orden.
Opgave A6.2.5: To enzymer med samme substrat
Før en celle kan bruge glucose, bliver der sat en phosphatgruppe på molekylet. I de fleste af kroppens celler katalyseres reaktionen af enzymet hexokinase. I leveren katalyseres den af enzymet glucokinase. De to enzymer har samme substrat, men meget forskellig Michaelis-konstant.
| Enzym | Findes i | KM for glucose |
|---|---|---|
| hexokinase | de fleste celler, fx i hjernen og musklerne | 0,10 mM |
| glucokinase | leveren | 10 mM |
Koncentrationen af glucose i blodet er omkring 5,0 mM før et måltid og kan stige til omkring 8,0 mM efter et måltid. Regn med, at koncentrationen af glucose er den samme i cellerne som i blodet.
- Hvilket af de to enzymer binder glucose bedst? Begrund svaret med KM.
- Beregn for hvert af de to enzymer, hvor mange procent af vmax starthastigheden udgør, når [glucose] = 5,0 mM.
- Beregn for hvert af de to enzymer, hvor mange procent af vmax starthastigheden udgør, når [glucose] = 8,0 mM.
- Forklar ud fra resultaterne, hvorfor leveren optager mere glucose efter et måltid, mens hjernen bruger glucose næsten lige hurtigt før og efter måltidet.
Et enzym med lille KM bliver mættet ved en lav koncentration af substrat. Divideres Michaelis-Menten-ligningen med vmax på begge sider, fås den andel af vmax, som hexokinase eller glucokinase arbejder med: v / vmax = [glucose] / (KM + [glucose]).
For hexokinase ved 5,0 mM glucose er andelen 5,0 mM / (0,10 mM + 5,0 mM). For glucokinase ved 5,0 mM glucose er den 5,0 mM / (10 mM + 5,0 mM). Gang med 100 for at få procent.
Du kan begynde forklaringen sådan: “Hexokinase er næsten … ved begge koncentrationer af glucose, så hastigheden … Glucokinase arbejder kun med … % af vmax før måltidet, så hastigheden kan …, når koncentrationen af glucose stiger.”
Hexokinase binder glucose bedst. KM er 100 gange mindre for hexokinase end for glucokinase. Hexokinase når derfor halvdelen af sin vmax allerede ved 0,10 mM glucose, mens glucokinase først når halvdelen ved 10 mM.
Andelen af vmax findes ved at dividere Michaelis-Menten-ligningen med vmax:
\[ \frac{v}{v_\mathrm{max}} = \frac{[\mathrm{glucose}]}{K_\mathrm{M} + [\mathrm{glucose}]} \]
Hexokinase ved 5,0 mM glucose:
\[ \frac{v}{v_\mathrm{max}} = \frac{5{,}0\ \mathrm{mM}}{0{,}10\ \mathrm{mM} + 5{,}0\ \mathrm{mM}} = 0{,}98 = 98\ \% \]
Glucokinase ved 5,0 mM glucose:
\[ \frac{v}{v_\mathrm{max}} = \frac{5{,}0\ \mathrm{mM}}{10\ \mathrm{mM} + 5{,}0\ \mathrm{mM}} = 0{,}33 = 33\ \% \]
- Hexokinase ved 8,0 mM glucose:
\[ \frac{v}{v_\mathrm{max}} = \frac{8{,}0\ \mathrm{mM}}{0{,}10\ \mathrm{mM} + 8{,}0\ \mathrm{mM}} = 0{,}99 = 99\ \% \]
Glucokinase ved 8,0 mM glucose:
\[ \frac{v}{v_\mathrm{max}} = \frac{8{,}0\ \mathrm{mM}}{10\ \mathrm{mM} + 8{,}0\ \mathrm{mM}} = 0{,}44 = 44\ \% \]
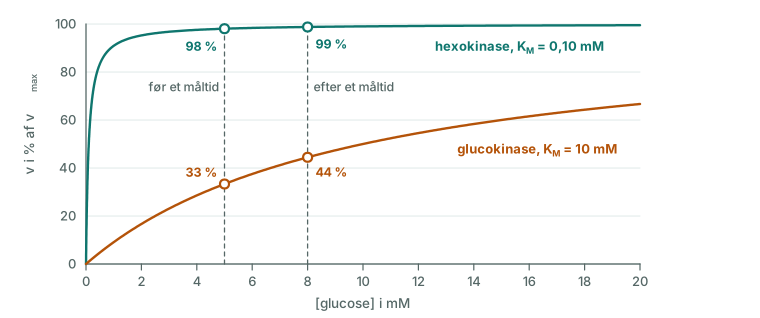
- Hexokinase er næsten mættet med glucose ved begge koncentrationer. Hastigheden er 98 % af vmax før måltidet og 99 % efter, så hjernen og musklerne omdanner glucose næsten lige hurtigt, uanset hvor højt blodsukkeret er. Det er en fordel for hjernen, som skal have energi hele tiden.
Glucokinase er langt fra mættet. Hastigheden stiger fra 33 % til 44 % af vmax, altså med en tredjedel, når koncentrationen af glucose stiger fra 5,0 mM til 8,0 mM. Leveren optager derfor mere glucose, når blodsukkeret er højt, og er på den måde med til at få blodsukkeret ned igen.
Opgave A6.2.6: Tilpasning med et CAS-værktøj
Pyruvat er det stof, glucose først bliver nedbrudt til i cellerne. Når musklerne arbejder hårdt, omdanner enzymet lactatdehydrogenase pyruvat til lactat. I et forsøg med lactatdehydrogenase er starthastigheden v målt ved seks koncentrationer af pyruvat.
| [pyruvat] i mM | 0,050 | 0,10 | 0,20 | 0,40 | 0,80 | 1,6 |
|---|---|---|---|---|---|---|
| v i µM/min | 12,4 | 21,3 | 32,6 | 44,8 | 54,8 | 62,4 |
- Opskriv Michaelis-Menten-ligningen for reaktionen med [pyruvat] i stedet for [S].
- Afbild v som funktion af [pyruvat] i et CAS-værktøj, og tilpas modellen y = a · x / (b + x) til målingerne. Angiv a og b.
- Vurdér ud fra grafen, om målingerne følger Michaelis-Menten-ligningen.
- Angiv vmax og KM for lactatdehydrogenase med enheder.
Skriv koncentrationerne af pyruvat i én liste og starthastighederne i en anden. Vælg en regression, hvor du selv skriver modellen, og skriv y = a · x / (b + x). I modellen er x koncentrationen af pyruvat, og y er starthastigheden.
Regressionen for lactatdehydrogenase giver a = 71,4 og b = 0,238. Sammenlign modellen med Michaelis-Menten-ligningen: a står på pladsen for vmax, og b står på pladsen for KM. vmax har samme enhed som v, og KM har samme enhed som [pyruvat].
Se så på grafen: ligger punkterne tæt på kurven, og ligger de tilfældigt over og under den?
- Michaelis-Menten-ligningen for lactatdehydrogenase med pyruvat som substrat er
\[ v = \frac{v_\mathrm{max} \cdot [\mathrm{pyruvat}]}{K_\mathrm{M} + [\mathrm{pyruvat}]} \]
- Regression med modellen y = a · x / (b + x) giver a = 71,4 og b = 0,238.
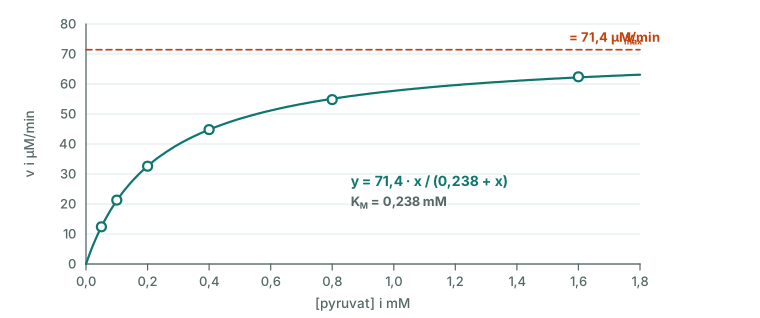
Punkterne ligger tæt på kurven og tilfældigt over og under den. Målingerne for lactatdehydrogenase følger Michaelis-Menten-ligningen.
a svarer til vmax, og b svarer til KM, så vmax = 71,4 µM/min og KM = 0,238 mM. Modellen er
\[ v = \frac{71{,}4\ \dfrac{\mathrm{\mu M}}{\mathrm{min}} \cdot [\mathrm{pyruvat}]}{0{,}238\ \mathrm{mM} + [\mathrm{pyruvat}]} \]
Du kan kontrollere resultatet i tabellen. Halvdelen af vmax er 35,7 µM/min, og den hastighed skal nås ved [pyruvat] = KM = 0,238 mM. Det passer: 35,7 µM/min ligger mellem målingerne ved 0,20 mM og 0,40 mM pyruvat.
Opgave A6.2.7: Den rette linje
Når en nervecelle har sendt et signal videre med signalstoffet acetylcholin, spalter enzymet acetylcholinesterase stoffet, så signalet stopper igen. I et forsøg med acetylcholinesterase er starthastigheden v målt ved seks koncentrationer af acetylcholin.
| [acetylcholin] i mM | 0,025 | 0,050 | 0,10 | 0,20 | 0,40 | 0,80 |
|---|---|---|---|---|---|---|
| v i µM/min | 9,7 | 16,1 | 23,6 | 30,9 | 37,0 | 40,5 |
- Beregn 1/[acetylcholin] og 1/v for hver måling.
- Afbild 1/v som funktion af 1/[acetylcholin], og bestem forskriften for den bedste rette linje. Vurdér, om målingerne følger Michaelis-Menten-ligningen.
- Bestem vmax ud fra linjens skæring med y-aksen.
- Bestem KM ud fra linjens hældning.
Det lineære udtryk for acetylcholinesterase er 1/v = KM / vmax · 1/[acetylcholin] + 1/vmax. Den første måling giver 1/[acetylcholin] = 1/(0,025 mM) = 40 mM−1 og 1/v = 1/(9,7 µM/min) = 0,1031 min/µM. Lad et regneark eller et CAS-værktøj regne de reciprokke værdier ud, og lav lineær regression på dem.
Regressionen for acetylcholinesterase giver y = 0,00202 · x + 0,0221. Skæringen med y-aksen er b = 1 / vmax, så vmax = 1 / b. Hældningen er a = KM / vmax, så KM = a · vmax.
- Det lineære udtryk for acetylcholinesterase med acetylcholin som substrat er
\[ \frac{1}{v} = \frac{K_\mathrm{M}}{v_\mathrm{max}} \cdot \frac{1}{[\mathrm{acetylcholin}]} + \frac{1}{v_\mathrm{max}} \]
| 1/[acetylcholin] i mM−1 | 40 | 20 | 10 | 5,0 | 2,5 | 1,25 |
|---|---|---|---|---|---|---|
| 1/v i min/µM | 0,1031 | 0,0621 | 0,0424 | 0,0324 | 0,0270 | 0,0247 |
- Lineær regression giver y = 0,00202 · x + 0,0221 med r2 = 0,9999. Linjen er ikke tvunget gennem (0,0).
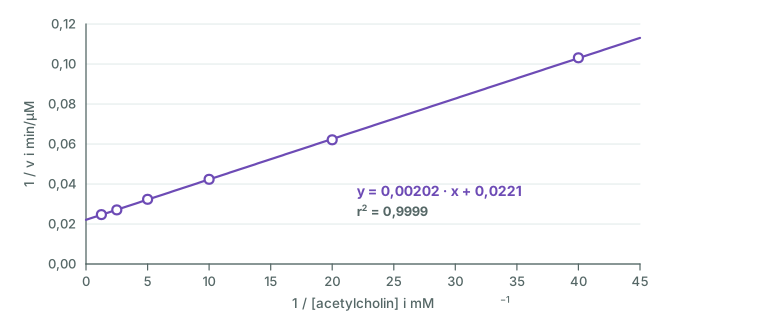
Med symboler og enheder er modellen
\[ \frac{1}{v} = 0{,}00202\ \dfrac{\mathrm{min \cdot mM}}{\mathrm{\mu M}} \cdot \frac{1}{[\mathrm{acetylcholin}]} + 0{,}0221\ \dfrac{\mathrm{min}}{\mathrm{\mu M}} \]
Punkterne ligger tæt på linjen og tilfældigt over og under den. Målingerne for acetylcholinesterase følger Michaelis-Menten-ligningen.
- Skæringen med y-aksen er b = 1 / vmax:
\[ v_\mathrm{max} = \frac{1}{b} = \frac{1}{0{,}0221\ \dfrac{\mathrm{min}}{\mathrm{\mu M}}} = 45{,}2\ \dfrac{\mathrm{\mu M}}{\mathrm{min}} \]
- Hældningen er a = KM / vmax:
\[ K_\mathrm{M} = a \cdot v_\mathrm{max} = 0{,}00202\ \dfrac{\mathrm{min \cdot mM}}{\mathrm{\mu M}} \cdot 45{,}2\ \dfrac{\mathrm{\mu M}}{\mathrm{min}} = 0{,}0913\ \mathrm{mM} \]
For acetylcholinesterase er vmax = 45,2 µM/min og KM = 0,0913 mM. Tilpasses Michaelis-Menten-ligningen direkte til målingerne med et CAS-værktøj, fås vmax = 45,2 µM/min og KM = 0,0912 mM. De to metoder giver næsten det samme.
Opgave A6.2.8: Hvilken slags inhibitor?
Blyioner, Pb2+, er giftige. De hæmmer blandt andet et af de enzymer, der danner hæmgruppen til hæmoglobin. Figuren viser starthastigheden v for enzymet som funktion af koncentrationen af substratet S, uden blyioner og med blyioner. Der er lige meget enzym i de to forsøg. De stiplede linjer viser de hastigheder, kurverne nærmer sig.
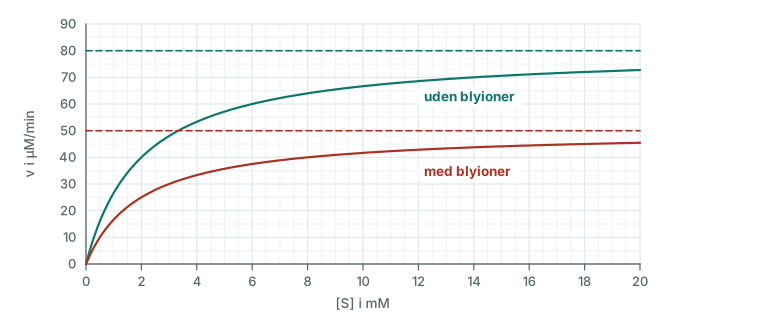
- Aflæs vmax og KM for forsøget uden blyioner.
- Aflæs vmax og KM for forsøget med blyioner.
- Afgør, om blyioner er en kompetitiv eller en non-kompetitiv inhibitor for enzymet. Begrund svaret.
- Forklar, hvorfor det ikke hjælper at tilsætte mere substrat, når enzymet er hæmmet af blyioner.
Aflæs vmax på den stiplede linje for hver af de to kurver, uden blyioner og med blyioner. KM er den koncentration af substrat, hvor kurven har nået halvdelen af sin egen vmax. Sammenlign så de to forsøg: en kompetitiv inhibitor gør KM større og ændrer ikke vmax. En non-kompetitiv inhibitor gør vmax mindre og ændrer ikke KM.
Uden blyioner er vmax = 80 µM/min, så KM aflæses, hvor kurven er nået op på 40 µM/min. Med blyioner er vmax = 50 µM/min, så KM aflæses, hvor kurven er nået op på 25 µM/min.
Du kan begynde forklaringen i spørgsmål d sådan: “Blyionerne sætter sig ikke i det aktive center, men … Substratet konkurrerer derfor ikke med blyionerne om …, og mere substrat kan ikke …”
Uden blyioner nærmer kurven sig 80 µM/min, så vmax = 80 µM/min. Halvdelen er 40 µM/min, og den hastighed nås ved [S] = 2,0 mM, så KM = 2,0 mM.
Med blyioner nærmer kurven sig 50 µM/min, så vmax = 50 µM/min. Halvdelen er 25 µM/min, og den hastighed nås ved [S] = 2,0 mM, så KM = 2,0 mM.
| Forsøg | vmax | KM |
|---|---|---|
| uden blyioner | 80 µM/min | 2,0 mM |
| med blyioner | 50 µM/min | 2,0 mM |
Blyionerne gør vmax mindre, mens KM er uændret. Blyioner er derfor en non-kompetitiv inhibitor for enzymet.
Blyionerne sætter sig ikke i det aktive center, men et andet sted på enzymet, og ændrer enzymets form. Substratet konkurrerer derfor ikke med blyionerne om pladsen, og mere substrat kan ikke fortrænge dem. En del af enzymmolekylerne er sat ud af spillet, uanset hvor meget substrat der er, så vmax bliver mindre. De enzymmolekyler, der ikke har bundet en blyion, virker som før, og derfor er KM den samme.
Opgaver i eksamensstil
Opgaverne ligner dem, du møder til den skriftlige prøve i kemi A. Facit viser en besvarelse, som den skal se ud til prøven: udtrykket, grafen med punkter og model, en vurdering af punkternes beliggenhed og resultaterne med enheder.
Opgave A6.2.eks.1: Bakterien i mavesækken
Bakterien Helicobacter pylori er den hyppigste årsag til mavesår. Den kan leve i mavesækken, selv om mavesyren har pH omkring 2. Bakterien danner enzymet urease, som spalter urinstof, CO(NH2)2, til ammoniak og carbondioxid. Ammoniakken neutraliserer syren lige omkring bakterien. Reaktionsskemaet er ikke afstemt:
CO(NH2)2(aq) + H2O(l) → NH3(aq) + CO2(aq)
I et forsøg med urease fra bakterien er starthastigheden v målt ved syv koncentrationer af urinstof.
| [urinstof] i mM | 0,10 | 0,20 | 0,40 | 0,80 | 1,6 | 3,2 | 6,4 |
|---|---|---|---|---|---|---|---|
| v i µM/min | 9,0 | 14,8 | 20,8 | 26,5 | 30,6 | 33,1 | 34,7 |
- Afstem reaktionsskemaet for spaltningen af urinstof.
- Undersøg, om målingerne følger Michaelis-Menten-ligningen, og bestem vmax og KM.
- I mavesækken er koncentrationen af urinstof omkring 3,0 mM. Beregn starthastigheden ved denne koncentration, og vurdér, om reaktionen er nærmest af første eller af nulte orden med hensyn til urinstof.
- Opskriv reaktionsskemaet for reaktionen mellem ammoniak og oxoniumioner, og forklar, hvordan urease hjælper bakterien med at overleve i mavesyren.
Tæl atomerne af hvert grundstof på begge sider, når du afstemmer spaltningen af urinstof. Til spørgsmål b skriver du Michaelis-Menten-ligningen op med [urinstof], afbilder v som funktion af [urinstof] og tilpasser modellen y = a · x / (b + x) i et CAS-værktøj.
Der er to nitrogenatomer i urinstof, så der dannes 2 NH3. Regressionen for urease giver a = 36,2 og b = 0,295. Husk grafen med punkter og model og en sætning om, hvordan punkterne ligger i forhold til kurven.
Til spørgsmål c sammenligner du 3,0 mM med KM. Du kan begynde sådan: “Koncentrationen af urinstof er omkring … gange større end KM, så urease er næsten …, og reaktionen er nærmest af … orden.”
Til spørgsmål d: ammoniak er en base, som optager en hydron fra en oxoniumion.
- Der er to nitrogenatomer i urinstof, så der dannes to molekyler ammoniak:
CO(NH2)2(aq) + H2O(l) → 2 NH3(aq) + CO2(aq)
- Udtrykket, der skal undersøges
\[ v = \frac{v_\mathrm{max} \cdot [\mathrm{urinstof}]}{K_\mathrm{M} + [\mathrm{urinstof}]} \]
Graf og regression
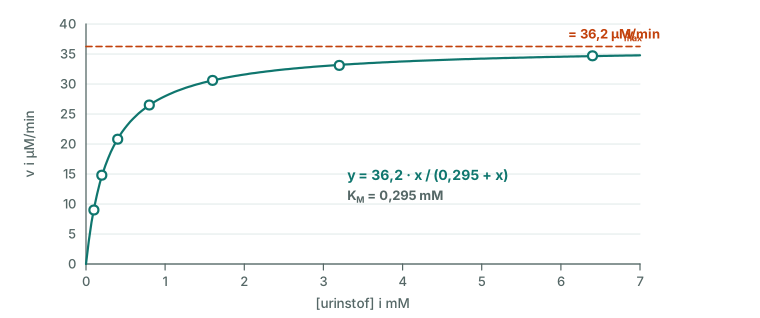
Regression med modellen y = a · x / (b + x) giver a = 36,2 og b = 0,295.
Vurdering af modellen
Punkterne ligger tæt på kurven og tilfældigt over og under den. Målingerne for urease følger Michaelis-Menten-ligningen.
Konklusion
vmax = 36,2 µM/min og KM = 0,295 mM. Modellen er
\[ v = \frac{36{,}2\ \dfrac{\mathrm{\mu M}}{\mathrm{min}} \cdot [\mathrm{urinstof}]}{0{,}295\ \mathrm{mM} + [\mathrm{urinstof}]} \]
- Ved [urinstof] = 3,0 mM giver modellen
\[ v = \frac{36{,}2\ \dfrac{\mathrm{\mu M}}{\mathrm{min}} \cdot 3{,}0\ \mathrm{mM}}{0{,}295\ \mathrm{mM} + 3{,}0\ \mathrm{mM}} = 33{,}0\ \dfrac{\mathrm{\mu M}}{\mathrm{min}} \]
\[ \frac{v}{v_\mathrm{max}} = \frac{33{,}0\ \dfrac{\mathrm{\mu M}}{\mathrm{min}}}{36{,}2\ \dfrac{\mathrm{\mu M}}{\mathrm{min}}} = 0{,}91 = 91\ \% \]
Koncentrationen af urinstof er omkring 10 gange større end KM, og urease arbejder med 91 % af vmax. Enzymet er næsten mættet, så hastigheden afhænger kun lidt af [urinstof]: fordobles koncentrationen til 6,0 mM, stiger hastigheden kun til 95 % af vmax. Reaktionen er derfor nærmest af nulte orden med hensyn til urinstof.
- Ammoniak er en base og optager en hydron fra en oxoniumion:
NH3(aq) + H3O+(aq) → NH4+(aq) + H2O(l)
Urease danner ammoniak af urinstof lige omkring bakterien. Ammoniakken fjerner oxoniumioner fra mavesyren, så [H3O+] falder, og pH stiger tæt på bakterien. Den lave KM betyder, at urease arbejder næsten med fuld hastighed, selv om der kun er lidt urinstof i mavesækken.
Opgave A6.2.eks.2: Alkohol i leveren
Ethanol nedbrydes i leveren. I det første trin oxiderer enzymet alkoholdehydrogenase ethanol til ethanal. I et forsøg med alkoholdehydrogenase er starthastigheden v målt ved otte koncentrationer af ethanol.
| [ethanol] i mM | 0,25 | 0,50 | 1,0 | 2,0 | 4,0 | 8,0 | 16 | 32 |
|---|---|---|---|---|---|---|---|---|
| v i µM/min | 12,1 | 20,6 | 30,4 | 40,5 | 48,4 | 53,6 | 56,9 | 58,2 |
- Angiv stofklassen for ethanol og stofklassen for ethanal.
- Undersøg, om målingerne følger Michaelis-Menten-ligningen, og bestem vmax og KM.
- En promille på 1,0 svarer til [ethanol] = 22 mM i blodet. Argumentér ud fra Michaelis-Menten-ligningen for, at nedbrydningen af ethanol er af nulte orden med hensyn til ethanol ved denne koncentration.
- Sidst på natten er koncentrationen af ethanol faldet til 0,50 mM. Vurdér, om nedbrydningen stadig er af nulte orden med hensyn til ethanol.
Ethanol er CH3CH2OH, og ethanal er CH3CHO. Find den funktionelle gruppe i hvert stof. Til spørgsmål b skriver du Michaelis-Menten-ligningen op med [ethanol], afbilder v som funktion af [ethanol] og tilpasser modellen y = a · x / (b + x) i et CAS-værktøj.
Regressionen for alkoholdehydrogenase giver a = 60,2 og b = 0,973. Til spørgsmål c ser du på nævneren KM + [ethanol], når [ethanol] = 22 mM.
Du kan begynde argumentet sådan: “KM er omkring … gange mindre end [ethanol], så KM + [ethanol] ≈ … Så kan [ethanol] forkortes væk, og v ≈ …”
Til spørgsmål d sammenligner du 0,50 mM med KM og beregner, hvor mange procent af vmax starthastigheden udgør.
Ethanol, CH3CH2OH, har en hydroxygruppe og er en alkohol (en primær alkohol). Ethanal, CH3CHO, har en aldehydgruppe og er et aldehyd.
Udtrykket, der skal undersøges
\[ v = \frac{v_\mathrm{max} \cdot [\mathrm{ethanol}]}{K_\mathrm{M} + [\mathrm{ethanol}]} \]
Graf og regression
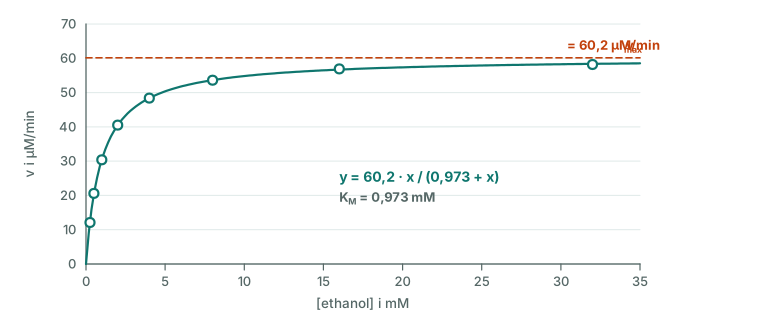
Regression med modellen y = a · x / (b + x) giver a = 60,2 og b = 0,973.
Vurdering af modellen
Punkterne ligger tæt på kurven og tilfældigt over og under den. Målingerne for alkoholdehydrogenase følger Michaelis-Menten-ligningen.
Konklusion
vmax = 60,2 µM/min og KM = 0,973 mM. Modellen er
\[ v = \frac{60{,}2\ \dfrac{\mathrm{\mu M}}{\mathrm{min}} \cdot [\mathrm{ethanol}]}{0{,}973\ \mathrm{mM} + [\mathrm{ethanol}]} \]
- Ved [ethanol] = 22 mM er KM = 0,973 mM omkring 23 gange mindre end [ethanol]. KM betyder derfor næsten intet i nævneren, så KM + [ethanol] ≈ [ethanol]. Så kan [ethanol] forkortes væk:
\[ v = \frac{v_\mathrm{max} \cdot [\mathrm{ethanol}]}{K_\mathrm{M} + [\mathrm{ethanol}]} \approx \frac{v_\mathrm{max} \cdot [\mathrm{ethanol}]}{[\mathrm{ethanol}]} = v_\mathrm{max} \]
Hastigheden afhænger ikke af [ethanol]. Hastighedsudtrykket har formen v = k med k = vmax, og det er hastighedsudtrykket for en reaktion af nulte orden. En beregning bekræfter det:
\[ v = \frac{60{,}2\ \dfrac{\mathrm{\mu M}}{\mathrm{min}} \cdot 22\ \mathrm{mM}}{0{,}973\ \mathrm{mM} + 22\ \mathrm{mM}} = 57{,}7\ \dfrac{\mathrm{\mu M}}{\mathrm{min}} \]
Det er 96 % af vmax. Alkoholdehydrogenase er næsten mættet med ethanol. Det passer med, at koncentrationen af ethanol i blodet falder med samme hastighed time efter time, som i afsnit A5.3.
- 0,50 mM er mindre end KM = 0,973 mM. Modellen giver
\[ v = \frac{60{,}2\ \dfrac{\mathrm{\mu M}}{\mathrm{min}} \cdot 0{,}50\ \mathrm{mM}}{0{,}973\ \mathrm{mM} + 0{,}50\ \mathrm{mM}} = 20{,}4\ \dfrac{\mathrm{\mu M}}{\mathrm{min}} \]
Det er kun 34 % af vmax. Alkoholdehydrogenase er ikke længere mættet, og hastigheden falder nu tydeligt, når [ethanol] falder. Nedbrydningen er derfor ikke længere af nulte orden. Jo længere koncentrationen kommer under KM, jo tættere kommer reaktionen på første orden med hensyn til ethanol. Den sidste rest ethanol forsvinder altså langsommere, end den rette linje fra nulte orden forudsiger.
Opgave A6.2.eks.3: Enzymer i vaskepulver
Vaskepulver indeholder proteaser. Det er enzymer, som spalter proteiner i pletter af fx blod, æg og græs, så pletterne kan vaskes af ved lav temperatur. I et forsøg undersøges en protease fra et vaskepulver. Som substrat bruges et lille peptid, der afgiver et gult stof, når det spaltes. Starthastigheden v kan derfor måles med et spektrofotometer.
| [peptid] i mM | 0,10 | 0,125 | 0,20 | 0,25 | 0,50 | 1,0 | 2,0 |
|---|---|---|---|---|---|---|---|
| v i µM/min | 13,2 | 16,0 | 23,0 | 26,6 | 39,6 | 53,3 | 64,2 |
- Forklar, hvorfor starthastigheden ikke bliver dobbelt så stor, når koncentrationen af peptid fordobles fra 1,0 mM til 2,0 mM.
- Vis ved at afbilde 1/v som funktion af 1/[peptid], at målingerne følger Michaelis-Menten-ligningen.
- Bestem vmax og KM for proteasen.
- I en vaskemaskine er koncentrationen af protein fra pletterne meget lavere end KM. Argumentér for, at spaltningen dér er af første orden med hensyn til substratet, og forklar, hvad der sker med hastigheden, hvis der bruges dobbelt så meget vaskepulver.
Se i tabellen, hvor meget starthastigheden for proteasen stiger fra 1,0 mM til 2,0 mM peptid, og tænk på, hvor mange af enzymmolekylerne der er optaget. Til spørgsmål b bruger du det lineære udtryk 1/v = KM / vmax · 1/[peptid] + 1/vmax. Beregn 1/[peptid] og 1/v for hver måling, og lav lineær regression.
Regressionen for proteasen giver y = 0,00630 · x + 0,0124. Skæringen er 1 / vmax, og hældningen er KM / vmax, så vmax = 1 / b og KM = a · vmax.
Du kan begynde argumentet i spørgsmål d sådan: “Når koncentrationen af substrat er meget mindre end KM, betyder den næsten intet i …, og v ≈ … Hastigheden er altså proportional med …” Husk, at vmax afhænger af mængden af enzym, mens KM ikke gør.
Når koncentrationen af peptid fordobles fra 1,0 mM til 2,0 mM, stiger starthastigheden kun fra 53,3 µM/min til 64,2 µM/min, altså med omkring 20 %. Ved de koncentrationer er de fleste proteasemolekyler allerede optaget af et peptidmolekyle. Enzymet er ved at være mættet, så mere peptid kan kun give lidt flere enzym-substrat-komplekser, og hastigheden nærmer sig vmax.
Udtrykket, der skal undersøges
\[ \frac{1}{v} = \frac{K_\mathrm{M}}{v_\mathrm{max}} \cdot \frac{1}{[\mathrm{peptid}]} + \frac{1}{v_\mathrm{max}} \]
Følger målingerne Michaelis-Menten-ligningen, ligger punkterne på en ret linje, når 1/v afbildes som funktion af 1/[peptid].
| 1/[peptid] i mM−1 | 10 | 8,0 | 5,0 | 4,0 | 2,0 | 1,0 | 0,50 |
|---|---|---|---|---|---|---|---|
| 1/v i min/µM | 0,0758 | 0,0625 | 0,0435 | 0,0376 | 0,0253 | 0,0188 | 0,0156 |
Graf og regression
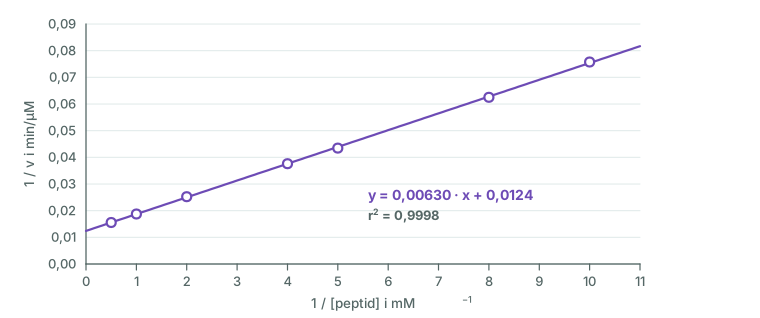
Lineær regression giver y = 0,00630 · x + 0,0124. Linjen er ikke tvunget gennem (0,0). Med symboler og enheder er modellen
\[ \frac{1}{v} = 0{,}00630\ \dfrac{\mathrm{min \cdot mM}}{\mathrm{\mu M}} \cdot \frac{1}{[\mathrm{peptid}]} + 0{,}0124\ \dfrac{\mathrm{min}}{\mathrm{\mu M}} \]
Vurdering af modellen
Punkterne ligger tæt på linjen og tilfældigt over og under den, og forklaringsgraden er r2 = 0,9998. Modellen beskriver målingerne godt, så målingerne for proteasen følger Michaelis-Menten-ligningen.
- Skæringen med y-aksen er b = 1 / vmax, og hældningen er a = KM / vmax:
\[ v_\mathrm{max} = \frac{1}{b} = \frac{1}{0{,}0124\ \dfrac{\mathrm{min}}{\mathrm{\mu M}}} = 80{,}6\ \dfrac{\mathrm{\mu M}}{\mathrm{min}} \]
\[ K_\mathrm{M} = a \cdot v_\mathrm{max} = 0{,}00630\ \dfrac{\mathrm{min \cdot mM}}{\mathrm{\mu M}} \cdot 80{,}6\ \dfrac{\mathrm{\mu M}}{\mathrm{min}} = 0{,}508\ \mathrm{mM} \]
For proteasen er vmax = 80,6 µM/min og KM = 0,508 mM.
- Når koncentrationen af substrat er meget mindre end KM, betyder [S] næsten intet i nævneren i Michaelis-Menten-ligningen, så KM + [S] ≈ KM:
\[ v = \frac{v_\mathrm{max} \cdot [\mathrm{S}]}{K_\mathrm{M} + [\mathrm{S}]} \approx \frac{v_\mathrm{max}}{K_\mathrm{M}} \cdot [\mathrm{S}] \]
Hastigheden er proportional med [S]. Hastighedsudtrykket har formen v = k · [S] med k = vmax / KM, og det er hastighedsudtrykket for en reaktion af første orden med hensyn til substratet.
Dobbelt så meget vaskepulver giver dobbelt så meget protease i vandet. Så bliver vmax dobbelt så høj, mens KM er uændret, fordi den hører til enzymet og substratet. Brøken vmax / KM bliver derfor dobbelt så stor, og proteinet i pletterne spaltes dobbelt så hurtigt.
Opgave A6.2.eks.4: Et lægemiddel mod diabetes
Acarbose er et lægemiddel mod type 2-diabetes. Det hæmmer de enzymer i tyndtarmen, der spalter stivelse og disaccharider til glucose, så blodsukkeret stiger langsommere efter et måltid. Et af enzymerne er maltase, som spalter maltose til glucose. I et forsøg med maltase er starthastigheden v målt ved syv koncentrationer af maltose, først uden acarbose og derefter med acarbose i opløsningen. Der er lige meget maltase i alle målingerne.
| [maltose] i mM | 1,0 | 2,0 | 4,0 | 8,0 | 16 | 32 | 64 |
|---|---|---|---|---|---|---|---|
| v uden acarbose i µM/min | 9,6 | 16,5 | 24,3 | 32,4 | 38,7 | 42,9 | 45,5 |
| v med acarbose i µM/min | 3,7 | 6,8 | 12,0 | 19,0 | 27,2 | 34,9 | 40,2 |
- Opskriv reaktionsskemaet for spaltningen af maltose, C12H22O11, til glucose.
- Undersøg, om målingerne uden acarbose følger Michaelis-Menten-ligningen, og bestem vmax og KM.
- Bestem vmax og KM for forsøget med acarbose.
- Vurdér, om acarbose er en kompetitiv eller en non-kompetitiv inhibitor for maltase, og forklar, hvad det fortæller om, hvor på enzymet acarbose binder sig.
Maltose er et disaccharid af to glucoseenheder, og det spaltes af vand. Til spørgsmål b og c tilpasser du modellen y = a · x / (b + x) i et CAS-værktøj, først til målingerne uden acarbose og derefter til målingerne med acarbose. Vis begge kurver i samme graf.
Uden acarbose giver regressionen for maltase a = 48,2 og b = 3,92. Med acarbose giver den a = 47,9 og b = 12,1. Sammenlign de to forsøg: en kompetitiv inhibitor gør KM større og ændrer ikke vmax. En non-kompetitiv inhibitor gør vmax mindre og ændrer ikke KM.
Du kan begynde vurderingen sådan: “vmax er næsten … i de to forsøg, mens KM er omkring … gange … med acarbose. Acarbose er derfor en … inhibitor, og den binder sig i …”
- Maltose er et disaccharid af to glucoseenheder. Glykosidbindingen spaltes af vand ved en hydrolyse:
C12H22O11(aq) + H2O(l) → 2 C6H12O6(aq)
- Udtrykket, der skal undersøges
\[ v = \frac{v_\mathrm{max} \cdot [\mathrm{maltose}]}{K_\mathrm{M} + [\mathrm{maltose}]} \]
Graf og regression
Regression med modellen y = a · x / (b + x) på målingerne uden acarbose giver a = 48,2 og b = 3,92.
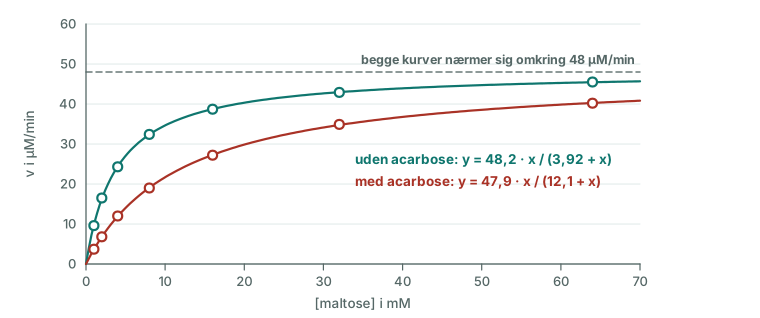
Vurdering af modellen
Punkterne uden acarbose ligger tæt på kurven og tilfældigt over og under den. Målingerne for maltase følger Michaelis-Menten-ligningen.
Konklusion
Uden acarbose er vmax = 48,2 µM/min og KM = 3,92 mM. Modellen er
\[ v = \frac{48{,}2\ \dfrac{\mathrm{\mu M}}{\mathrm{min}} \cdot [\mathrm{maltose}]}{3{,}92\ \mathrm{mM} + [\mathrm{maltose}]} \]
Regression med den samme model på målingerne med acarbose giver a = 47,9 og b = 12,1. Punkterne med acarbose ligger også tæt på deres kurve og tilfældigt omkring den. Med acarbose er vmax = 47,9 µM/min og KM = 12,1 mM.
De to forsøg sammenlignes:
| Forsøg | vmax | KM |
|---|---|---|
| uden acarbose | 48,2 µM/min | 3,92 mM |
| med acarbose | 47,9 µM/min | 12,1 mM |
vmax er næsten den samme i de to forsøg. Forskellen er under 1 % og ligger inden for måleusikkerheden. KM er derimod blevet større:
\[ \frac{K_\mathrm{M}(\text{med acarbose})}{K_\mathrm{M}(\text{uden acarbose})} = \frac{12{,}1\ \mathrm{mM}}{3{,}92\ \mathrm{mM}} = 3{,}1 \]
KM er omkring 3 gange større med acarbose. Uændret vmax og større KM viser, at acarbose er en kompetitiv inhibitor for maltase.
En kompetitiv inhibitor sætter sig i enzymets aktive center og konkurrerer med substratet om pladsen. Acarbose binder sig altså i det aktive center på maltase. Det passer med, at acarbose ligner et lille kulhydrat. Ved en høj koncentration af maltose fortrænger maltose inhibitoren fra det aktive center, og derfor kan hastigheden stadig nå op på den samme vmax.